以下大部分内容发表于研究报告《从科学事实的角度看同性恋运动的修辞》。doi: 10.12731/978-5-907208-04-9,ISBN 978-5-907208-04-9
主要发现
1. 假设的“同性恋基因”尚不为人所知,也没有被任何人发现。
2. 关于“同性恋的先天性”这一说法的研究存在许多方法论上的不准确和矛盾,使我们无法得出明确的结论。
3. 即使是 LGBT*+ 运动活动人士引用的现有研究也没有谈到同性恋倾向的遗传决定,而充其量只是一种复杂的影响,其中遗传因素与环境影响相结合,据称决定了倾向,教养等
4. 同性恋运动中的一些知名人物,包括科学家,批评了关于同性恋的生物学预先决定的说法,并说这是由有意识的选择造成的。
5. LGBT* 宣传方法论的作者 «After The Ball» 建议对同性恋的本质撒谎:
首先,必须让公众相信,同性恋者是环境的受害者,他们的性取向并非自主选择,就像他们的身高、肤色、才能或残疾一样。虽然对大多数人来说,性取向似乎是先天倾向与童年和青春期早期环境因素复杂相互作用的结果,但我们坚持认为,实际上,同性恋者应该被视为天生如此。
<..>
同性恋者没有选择任何事情,没有人愚弄或引诱他们。”
介绍
同性恋吸引力是与生俱来的论点 - 所谓的。关于同性恋吸引力的生物决定论的假设是“LGBT*+”运动的基本假设之一。口号“生来如此”1积极传播于大众文化中,导致许多非专业人士认为同性恋的生物学起源是不争的事实,并得到了证明。 这是不对的。
关于同性恋的最可靠的事实并不表明是生物学上的,而是社会生态上的因果关系。 最近几十年来寻找支持生物学理论的数据的努力仅使人们更加怀疑这种数据是否存在。
同性恋的生物学起源论据本身并不完全是特定的-在其框架内,至少有两个假设可以解释同性恋性偏好的“先天性”机制:(A)同性恋吸引力是由“特殊基因”或遗传突变引起的,换句话说,同性恋被编码在人类DNA中并世代相传; (B)同性恋吸引力是由怀孕期间的任何异常(激素或免疫)引起的,这些异常可能会影响子宫中的胎儿并导致婴儿的同性恋偏好。
因此,关于生物学决定论假设的讨论将分为三个部分。 第一部分将对有关同性恋与基因之间关系的争论进行批判性研究,第二部分将对由于子宫内激素紊乱引起的同性恋吸引力的发展进行批判性研究。 在第三部分中,将对同性恋吸引力的自身免疫起源理论进行严格的研究。
第一部分:同性恋基因?
关于同性恋的遗传本质的陈述是基于在不具备遗传学专门知识的绝大多数人中,有选择地展示某些数据而压制了其他数据。 科学并不知道“同性恋基因”,尽管有许多尝试,但从未在任何地方发现它。
让我们看看 LGBT*+ 活动人士用来提出这一论点的研究。首先,值得简要描述一下科学家确定人类属性(性状)是否由基因决定的主要方法。这些方法包括双胞胎研究和分子遗传分析。
双胞胎研究
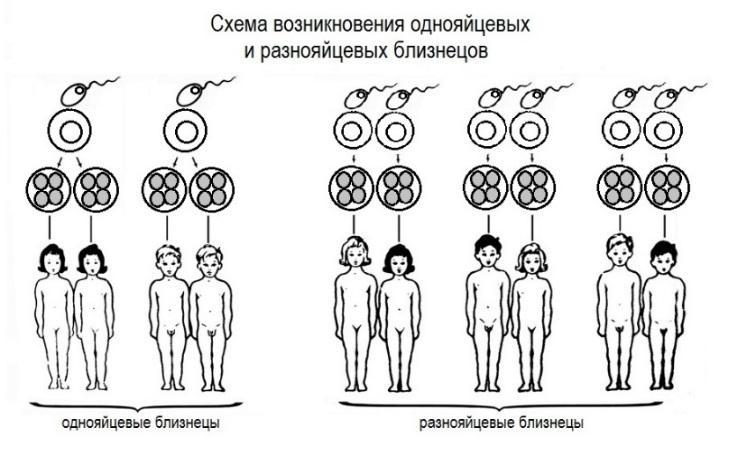
对同卵双胞胎进行检查是评估任何性状是否具有遗传基础的适当研究方法。 首先-“同卵双胞胎”一词是什么意思? 这样的双胞胎从同一个受精卵发育而来,该受精卵分为多个部分,从这些部分中发育出独立的生物体,它们是彼此的遗传拷贝。 它们的基因在100%上重合,您可以将其称为自然克隆。 同卵双胞胎也称为同卵双胞胎或同卵双胞胎。 同性恋双胞胎由不同的卵子形成,并受不同的精子受精。 它们的基因平均重合50%,可能有不同的性别,身高,眼睛的颜色,头发等。 不相同的双胞胎也称为不相同或双合子(杂合子)或双胞胎。
双生子研究考察性状一致性。性状一致性是指同卵双生子均表现出某一性状的概率。如果同卵双生子某一性状的一致性很高,则可以得出结论,该性状很可能是由遗传因素决定的。如果同卵双生子某一性状的一致性并不高于异卵双生子,则表明共同的环境因素可能比共同的基因对该性状的形成更为重要(Yarygin 2003)。
有必要准确说明一致性显示的内容。 它决不表示任何基因的存在。 双胞胎性状的一致性表明该性状的遗传程度。 在这里,有必要对孪生研究中“遗传性”一词的含义进行详细说明。 遗传是衡量种群中某个特定性状的变异性(即个体之间的差异有多大)与给定种群中的基因变异性的度量。 但是,在双胞胎研究中,遗传力不能衡量性状的遗传决定论。
几乎完全由遗传确定的性状可以具有非常低的遗传力值,而几乎没有遗传基础的性状可以具有较高的遗传力值。 例如,人类的手指(每个肢体上有五个手指)的数量几乎是完全由遗传决定的。 但是,人的手指数量具有低变异性的特征,并且在大多数情况下,观察到的变异性是由非遗传因素(例如事故)解释的,这导致该特征的遗传力系数较低。 也就是说,如果您发现三十对双胞胎,其中一对双胞胎的手指上没有五个手指,那么在其他双胞胎中,如果有双胞胎,则双胞胎的手指数相同。
相反,某些文化特征可能具有很高的遗传性。例如,如果我们研究20世纪中期美国人佩戴耳环的习惯,我们会发现它具有很高的遗传性,因为它具有很强的性别特异性,而这又与XX或XY染色体对的存在有关。因此,尽管佩戴耳环是一种文化现象而非生物现象,但它的差异与基因差异密切相关。例如,如果你研究30对双胞胎姐妹,其中一位佩戴耳环,那么另一位姐妹也100%会佩戴耳环。如今佩戴耳环的遗传性低于20世纪中期美国的水平,这并非因为美国人的基因库发生了变化,而是因为佩戴耳环的男性人数增加了(Block 1995)。
行为遗传学的先驱之一是德裔美国精神病学家弗朗茨·约瑟夫·卡尔曼。他在1952年发表的一篇论文中报告说,在他研究的37对同卵双胞胎中,如果其中一人是同性恋,那么另一人也是同性恋,这意味着一致率高达100%(Kallmann 1952)。卡尔曼没有具体说明他是如何验证研究参与者的同卵性的。他也没有说明他是如何招募研究参与者的,尽管该论文中提到:“寻找潜在参与者不仅通过精神病学、矫正和慈善组织,而且还通过与地下同性恋群体直接联系来进行”(Kallmann 1952)。因此,卡尔曼的研究受到了严重的批评(Taylor 1992):罗森塔尔指出,卡尔曼的受访者中精神疾病患者占多数(Rosenthal 1970),莱肯指出,与一般人群相比,卡尔曼的样本中同卵双胞胎的比例过高(Lykken 1987)。
爱德华·斯坦教授得出结论,卡尔曼的样本“根本无法代表同性恋群体”(斯坦,1999)。此外,卡尔曼本人也承认,他认为自己的研究结果只不过是一种“统计假象”(雷纳,1960)。在统计学中,像卡尔曼研究中的这种样本被称为“便利样本”——这类样本是根据研究者方便的标准来选择研究对象。这样的样本不能用于进行科学概括,因为其特征并不能反映总体特征。
例如,如果调查仅在清晨在购物中心进行了一天,则其结果不代表社会其他成员的意见,就像在一天的不同时间和一周几次进行调查的情况一样。 或者,如果您问商店的顾客是否会购买酒,那么在星期五晚上,结果将与星期天的结果不一致。
1968年,美国研究人员赫斯顿和希尔兹研究了七对同卵双胞胎的同性恋一致性。研究对象来自马兹利双胞胎登记册(Heston 1968)。所有受访者均为精神病患者。作者发现同卵双胞胎的同性恋一致率为43%。这项研究也受到了批评,包括作者本人也提出了批评,批评的原因是参与者患有精神疾病以及样本量极小(Taylor 1992;Heston 1968)。
贝利和皮拉德的研究
1991年,美国西北大学的迈克尔·贝利和波士顿大学的理查德·皮拉德开展了下一项关于双胞胎性吸引力的研究(Bailey 1991)。他们考察了不同血缘关系的兄弟中同性恋的一致性。他们研究了56对同卵双胞胎、54对异卵双胞胎、142对同父同母的兄弟和57对同父异母或同母异父的兄弟。下表列出了他们的分析结果。
同性恋和谐
取决于关系的程度(百利1991)
| 关系类型 | 总基因百分比 | 一致性 |
| 同卵双胞胎 | 100% | 52% |
| 异卵双胞胎 | 50% | 22% |
| 双胞胎兄弟 | 50% | 9,2% |
| 同父异母兄弟(非亲戚) | 无明显相似之处 | 11% |
Bailey和Pillard指出,由于在52%的情况下,同一对双胞胎中的第二个兄弟姐妹也有同性恋倾向,因此“ ...同性恋倾向是由于遗传影响...”。
与之前的双胞胎研究一样,贝利和皮拉德的研究也存在根本性问题。首先,如果同性恋是由基因决定的,那么同卵双胞胎的性取向一致率应该是100%,而不是52%,因为他们的基因是100%相同的,而不是52%。在对贝利和皮拉德论文的评论中,里施也指出,基因上没有血缘关系的人——同父异母或同母异父的兄弟——的性取向一致率甚至高于非双胞胎的亲兄弟,这表明环境因素的影响非常重要(Risch 1993)。根据遗传学原理,除了同卵双胞胎性取向一致率达到100%之外,异卵双胞胎和非双胞胎兄弟的性取向一致率也应该分别高于22%和9,2%(见下表)。
此外,同卵双胞胎的身份(遗传相似性的100%)与同卵双胞胎的身份(遗传相似性的50%)相差2.36倍,但如果我们将同卵双胞胎的身份与同卵双胞胎的一致性进行比较(50%)区别在于:2.39次,这再次表明环境对遗传的影响比遗传学更为明显(请参见下表)。
类别间一致性比较(Bailey 1991)
| 比较类别 | 遗传相似性差异 | 一致性之间的区别 |
| 同卵双胞胎和异卵双胞胎 | 普通基因的两倍 |
2.36
|
| 双胞胎兄弟和双胞胎兄弟 | 总基因百分比没有差异 |
2.39
|
其次,贝利和皮拉德没有选择同性恋的任意样本。 也就是说,他们没有按照公正的学术研究标准将研究对象包括在内:对结果不感兴趣,彼此不熟悉等。 正如研究员Baron所说:
“……相反,参与者是通过在同性恋杂志上刊登广告招募的。这种招募方法非常值得怀疑,因为它依赖于此类杂志的读者群以及同意参与者的动机。这种偏差可能导致分析结果出现偏差,例如,高估同性恋双胞胎的数量。为什么呢?因为参与者在同意参与之前会考虑他们双胞胎兄弟的性行为。这使样本的随机性受到质疑。为了保证科学有效性,样本应该尽可能随机,这意味着所有双胞胎都应该被纳入研究,然后分析他们的性行为……”(Baron 1993)。
第三,正如研究人员哈伯德和瓦尔德在他们的分析中写道:
“……异卵双胞胎的性取向一致率(22%)是兄弟(9,2%)的两倍多,这一事实表明,同性恋的形成并非由遗传因素造成,而是由环境因素造成。毕竟,异卵双胞胎的基因相似性与兄弟相似。如果环境和成长因素对异卵双胞胎的影响如此之大,那么同卵双胞胎受环境影响更大也就不足为奇了。毕竟,一个人对同卵双胞胎的心理认知与该双胞胎密不可分……”(Hubbard 1999)。
研究人员比林斯和贝克维尔斯在他们的评论中写道:“……尽管作者将他们的发现解释为同性恋的遗传基础的证据,但我们认为,相反,这些发现提供了证据表明,成长环境因素会影响同性恋的发展”(比林斯 1993 年,第 60 页)。
Bailey和Pillard的结果是否重复过?
是否有人重复了贝利和皮拉德的研究结果——即同卵双胞胎的性取向一致率至少达到52%?2000年,迈克尔·贝利本人曾试图在澳大利亚的一大群双胞胎中重复他的研究。结果发现,同性恋倾向的一致率甚至比他第一次研究的结果还要低。同卵双胞胎中,男性一致率为20%,女性为24%;而异卵双胞胎中,男性一致率为0%,女性为10% ( Bailey 2000)。
资料来源:Sally Ryan,《纽约时报》
2010年,瑞典流行病学家朗斯特伦(Långström)开展了一项针对双胞胎性取向的大型复杂研究,分析了数千对同卵双胞胎和异卵双胞胎的数据(Långström 2010)。研究人员根据一生中同性性伴侣的数量来定义同性恋倾向。他们计算了两个参数的一致性:一生中是否至少有过一位同性性伴侣,以及一生中同性性伴侣的总数。该样本的一致性率低于Bailey等人(1991)和(2000)两项研究的结果。在至少有过一位同性性伴侣的参与者群体中,男性同卵双胞胎的一致性为18%,异卵双胞胎为11%;女性同卵双胞胎的一致性分别为22%和17%。
资料来源:Karolinska研究所
在性伴侣总数方面,男性同卵双胞胎的一致率为5%,异卵双胞胎的一致率为0%;女性分别为11%和7%。在男性中,仅影响一对双胞胎中一人的环境因素分别解释了61%和66%的方差,而双胞胎共有的环境因素则完全无法解释任何方差。独特的环境因素分别解释了64%和66%的方差,而共同的环境因素分别解释了17%和16%的方差(Långström 2010)。
2002 年,美国哥伦比亚大学的 Peter Bearman 和耶鲁大学的 Hannah Brueckner 进行了一项具有代表性的大型研究,参与者众多(Bearman 2002)。
资料来源:hannahbrueckner.com
他们的同性恋倾向的和谐程度甚至更微不足道:在成对的同卵双胞胎中,6,7%;在不同的同卵双胞胎中,7,2%;在普通兄弟中,5,5%。 Birmen和Bruckner得出结论,他们被发现:
“……大量证据支持个体层面的社会化模型……我们的研究结果表明,性别中立的育儿方式,即不明确指出孩子的性别,会对同性恋倾向的发展产生影响……”(Bearman 2002)。
与前述研究不同,精神病学家肯尼斯·肯德勒及其同事进行了一项大型双胞胎研究,他们采用概率抽样方法,选取了794对双胞胎和1380名非亲缘兄弟姐妹作为样本(Kendler 2000)。作者得出结论,他们的研究结果“表明遗传因素可能对性取向有显著影响”。然而,该研究的样本量不足以得出关于遗传因素对性取向影响程度的有力结论:在324对同卵双胞胎中,只有19对包含一名具有同性恋倾向的个体,其中6对的同性恋倾向一致(包括第二个兄弟);在240对同性异卵双胞胎中,有15对至少包含一名具有同性恋倾向的个体,其中2对的同性恋倾向一致。564对双胞胎中只有8对(1,4%)的同性恋倾向一致,这一事实限制了这些结果在同卵双胞胎和异卵双胞胎之间进行严肃比较方面的应用。
应该牢记的是,同卵双胞胎周围几乎都是相同的环境-早恋,与其他孩子的关系等。 -与同卵双胞胎和普通兄弟姐妹相比。 由于同卵双胞胎的外表和性格相似,因此对同卵双胞胎的态度要比同卵双胞胎和普通兄弟姐妹的态度高。 因此,在某些情况下,较高的一致性系数可以由环境而非遗传因素来解释。
肯尼斯·肯德勒教授。
资料来源:弗吉尼亚联邦大学。
根据精神科医生Jeffrey Satinover(Satinover xnumx)全面影响一个人的性行为类型形成的因素可以分为五类:
1)宫内(产前)效应,例如激素浓度;
2)子宫外(产后)的物理影响,例如创伤和病毒感染;
3)的宫外经历,例如家庭互动,教育;
4)的产前经验,例如,刻板重复行为的增强作用;
5)的选择。
资料来源:ihrc.ch
同卵双胞胎的性状一致性并非100%,这不仅表明遗传因素的影响可以忽略不计,也表明非遗传因素不可能完全来自子宫内。毕竟,如果真是如此,一致性应该接近100%,因为同卵双胞胎暴露于相同的子宫内环境因素中”(Satinover 1996,第97页)。
如果基因在塑造人们对某些性欲和性行为的诱因中起作用,那么所有这些研究都可以使我们满怀信心地说,这个话题不会因遗传因素的影响而耗尽。 总结对双胞胎的研究,我们可以安全地得出结论,科学尚未证明普遍的性欲,尤其是同性恋倾向是由人类基因决定的。
分子遗传学
在研究遗传学参与同性恋倾向形成的问题以及这种参与程度(如果可能)的过程中,到目前为止,我们已经研究了通过经典遗传学确定性状(在特定情况下是同性恋吸引力)的遗传遗传的研究,但是他们没有确定特定的基因是造成这种性状的原因。 同时,可以借助所谓的遗传学来研究遗传学。 分子方法可以确定哪些特定的遗传变异与身体或行为特征有关。
迪恩·海默研究
最早尝试对同性恋倾向进行分子遗传学分析的研究之一是由美国马里兰州国立卫生研究院的迪恩·哈默及其同事开展的(Hamer 1993)。哈默研究了至少有一名同卵双胞胎男性的家庭,这些家庭中至少有一名双胞胎存在同性吸引。在这些家庭中,哈默筛选出40个家庭,这些家庭中同性恋兄弟的兄弟也存在同性吸引,并分析了他们DNA中相似区域的基因。这类研究被称为“遗传连锁研究”。
在遗传连锁研究中,对一组具有已知性状的受试者进行分析,寻找相似的DNA区域——称为标记。如果在同一DNA区域发现大量标记,则可以假定所有这些标记都是“一起”遗传的——连锁的——也就是说,它们可能是同一基因的一部分(Pulst 1999)。
Haymer说,在来自33的40对中,同性恋兄弟在X染色体上具有相同的性别区域,他称之为“ Xq28”。 Heimer得出结论,Xq28区域包含同性恋倾向基因。
有争议文章的作者-
在遗传学和性学会议上,
五月1995(芬恩1996)
首先,应该指出的是,海默的结果经常被误解。 许多人认为,Haymer在所有28对,所有33男人中都发现了相同的DNA区域-Xq66,但实际上,发现每对双胞胎中的兄弟之间Xq28区的核苷酸序列是相同的,并且所有对中的Xq28序列都不相同-Haymer找不到臭名昭著的“同性恋基因”。
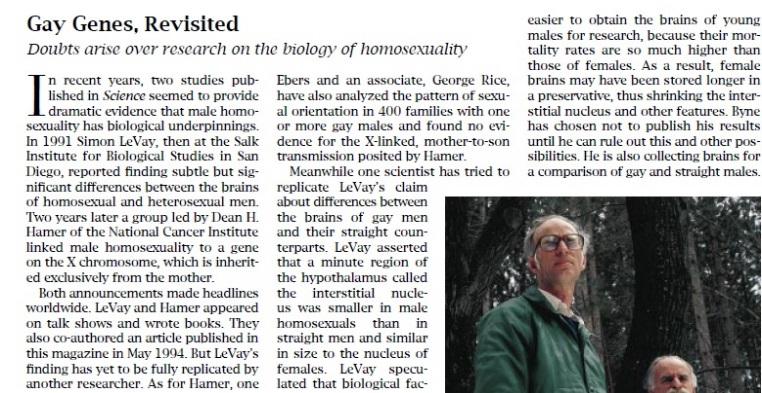
这项研究存在诸多重大缺陷。Hamer并未检测异性恋双胞胎中Xq28的共现情况,而仅检测了同性恋者(Byne 1994)。如果他只在同性恋者中发现了该区域,而未在异性恋兄弟中发现,那么他的结论将得到支持。然而,如果他也在异性恋者的兄弟中发现了Xq28,那么他的结论将无效(Horton 1995)。此外,正如Fausto-Sterling和Balaban所指出的,Hamer的样本数据并不完整:在40个案例中,仅有15个案例直接测量了DNA杂合性特征;其余25个案例的数据是间接计算的(Fausto-Sterling 1993)。Hamer等人仅在38%的案例中直接测量了母系X染色体杂合性水平,而在62%的案例中,他们只是根据现有数据库进行了计算。
以下这段与哈默1993年发表的文章相关的插曲值得一提。1995年,《纽约本地人》(New York Native)杂志发表了一篇题为《同性恋“基因”研究经不起审查:芝加哥论坛报记者约翰·克鲁德森揭露研究人员可能存在欺诈行为》(《芝加哥论坛报》,1995年)的文章。文章指出,哈默的研究因未能进行对照实验以确保异性恋者的兄弟也存在Xq28基因而受到多位科学家的强烈批评。批评者中包括哈佛大学的著名生物学家和遗传学家理查德·莱文廷和露丝·哈伯德(《芝加哥论坛报》,1995年)。此外,同一篇文章指出,美国国立卫生研究院联邦伦理委员会正在调查哈默实验室一名不愿透露姓名的年轻员工的投诉。该员工举报哈默篡改了他的研究:据该员工称,哈默故意将证明同性恋倾向遗传理论毫无根据的研究结果排除在发表之外(《芝加哥论坛报》,1995)。在《纽约本地人报》发表文章几个月后,《科学美国人》杂志也发表了一篇文章,证实了联邦伦理委员会对哈默展开调查的事实和原因(Horgan,1995,第26页)。美国国立卫生研究院并未公开调查结果,但哈默后来被调到了另一个部门。值得注意的是,哈默开展“同性恋基因”研究的经费原本是用于研究卡波西肉瘤的,卡波西肉瘤是一种皮肤癌,常见于患有艾滋病的同性恋男性(Mukherjee,2016,第375页)。哈默论文的有效性取决于另一组独立的研究人员能否获得相同的结果。但这种情况并没有发生。
Haymer结果的可复制性
1999年,由一位名叫赖斯(Rice)的科学家领导的西安大略大学研究团队,对52名男同性恋者进行了一项类似的研究(采用“基因连锁”方法)(Rice 1999)。作者未能重复海默(Heimer)的研究结果,并得出结论:“我们的研究没有发现男性同性恋与基因之间存在联系的证据。”
然后,在 2005 年,迪安·哈默 (Dean Hamer) 参与了一项新的研究(Mustanski 2005)。作者发现 Xq28 与同性恋倾向之间没有统计学上的显著关联,但表示他们在其他区域(7、8 和 10 号染色体上)发现了“有趣的关联”。
然而,2009 年的另一项研究也未能重复这些结果。当时,英国牛津大学和加拿大安大略大学的研究团队对 55 个有男同性恋者的家庭进行了研究。他们收集了 112 名参与者的遗传物质,并进行了一项全基因组关联研究,其中包括 6000 个基因标记(Ramagopalan 2010)。分析结果显示,遗传标记与同性恋之间没有统计学意义上的关联。
2015年,来自美国多个研究中心的一组作者利用全基因组关联研究的结果,宣布他们发现8号染色体上的一个区域与同性恋倾向存在显著关联,而Xq28区域也存在不太显著的关联(Sanders 2015)。在论文的结论中,作者承认“遗传因素对同性恋倾向的影响远非决定性的……很可能,它只是多因素共同作用的结果之一。”
2017年,同一研究团队采用了一种更现代、更精确的方法,即全基因组关联研究(GWAS)。GWAS利用基因组测序技术(读取DNA信息)来识别可能与某种性状相关的特定DNA特征。科学家们对大量具有和不具有某种共同性状的个体进行数百万次基因变异的检测,并比较两组人群中基因变异的频率。在具有某种性状的个体中更为常见的变异被认为与该性状相关。这一次,他们在13号和14号染色体上的某些区域发现了具有统计学意义的关联(Sanders 2017)。
桑德斯及其同事(2017)的一项研究并未发现决定同性恋倾向的基因,也未证实其遗传基础(作者本人否认这一点),也未证实海默1993年的研究结果,而海默的研究结果开启了关于同性恋基因的长期争论。该研究的结论之一是,上述所有基因变异都可能影响个体对同性恋倾向的易感性(桑德斯,2017,第3页)。
解码人类基因组的项目经理Francis Collins写道:
“同性恋男子的同卵双胞胎有近 20% 的概率也是同性恋(相比之下,普通人群中这一比例为 2-4%),这表明性取向受基因影响,但并非由 DNA 决定,任何涉及的基因都代表一种倾向,而不是预先决定的……”(Collins 2006)。
一项旨在识别与同性恋倾向相关的遗传变异的大型全基因组关联研究在2012年美国人类遗传学会年会上发表(Drabant 2012)。该研究未发现任何与同性恋倾向相关的显著基因变异,无论男女皆是如此。然而,该研究分析了来自23andMe数据库的数千名个体。
“根据基因组来预测一个人的性行为几乎是不可能的,”
参与这项研究的马萨诸塞州总医院分析和转化遗传学系教授本·尼尔说。
加州大学遗传学研究所教授大卫·柯蒂斯表示,
“人类中不存在对性取向产生重大影响的基因组合。根据基因组来预测一个人的性行为几乎是不可能的。”
表观遗传学
2015年,加州大学洛杉矶分校的一个研究团队在美国人类遗传学会(ASHG )年会上发表了一篇论文,声称他们基于表观遗传标记识别出了性取向,准确率高达67%(Ngun等人,2015)。为了最大限度地吸引公众关注,作者甚至组织了一场媒体参与的新闻发布会(ASHG,2015 )。尽管这项研究存在明显的矛盾,且媒体报道也存在争议( Yong,2015 ) ,但该消息仍然迅速成为主流报纸的头条新闻。
表观遗传学是一门研究现象的科学,在该现象中,基因的表达由于不影响基因中DNA序列变化的机制的影响而发生变化。 换句话说,表观遗传过程是那些其他因素影响基因表达程度(即人体的生理特性)的过程。 DNA分子的空间构型会影响基因的表达(表达),而这种构型是由特殊的调节蛋白(与DNA相关的酶)决定的。 影响的机制之一是DNA甲基化。 调节蛋白和DNA的组合称为表观遗传标记。
Young及其同事指出,他们研究的主要目标是检验利用表观遗传标记预测个体“性取向”的可行性。为此,他们分析了37对同卵双胞胎兄弟的DNA样本(每对兄弟中有一人是同性恋),以及10对同卵双胞胎兄弟的DNA样本(每对兄弟中两人均为同性恋)。正如摘要所述,研究人员使用FuzzyForest计算机统计算法检验了多种分类模型(异性恋与同性恋),最终选择了性能最佳的模型,该模型包含五个表观遗传标记,分类准确率达67%。作者假设性取向受这五个表观遗传标记控制。然而,这种解释引发了专家们的强烈批评(Science Media Center 2015 , Greally 2015 , Yong 2015 , Gelman 2015 , Briggs 2015)。这项研究的方法(样本量极低、统计方法存疑且假阳性结果风险高等)及其解释都引发了严重的质疑。阿尔伯特·爱因斯坦医学院表观基因组学中心的约翰·格雷利在评论恩贡及其同事的研究引发的热潮时指出:
“……我不想对他或他的同事进行个人评价,但如果我们想要拯救这个科学领域,我们就不能再允许糟糕的表观遗传学研究获得认可。所谓‘糟糕’,我的意思是无法解释的……”(Greally 2015)。
最后,跳过该简历在会议上发表的审稿人的客观性甚至受到质疑,并且该文章当然从未在任何地方发表过。
为什么分子遗传学研究的结果如此矛盾-多变?
遗传学的作用有限
支持同性恋倾向遗传起源的证据尚无定论。科学界目前尚未发现任何“同性恋基因”。本世纪初,一项名为“人类基因组计划”的大型国际项目启动。该计划旨在绘制人类遗传图谱,确定每个基因位于哪条染色体上,编码哪些蛋白质等等。任何人都可以验证这一点——该计划并未列出任何同性恋基因(参见美国国家生物技术信息中心的人类基因组资源)。
这是Mayer和McHugh在他们的工作中写道:
“……正如关于一个人的行为特征所反复确认的那样,遗传因素对同性恋倾向或行为方式的影响是可能的。 基因的表型表现通常取决于环境因素-即使是相同的基因,不同的环境也会导致形成不同的表型。 因此,即使某些遗传因素影响了同性恋倾向,性偏好和倾向也受到许多环境因素的影响,包括诸如心理和身体暴力以及性骚扰等社会压力因素。 为了更全面地了解性兴趣,欲望和动力的形成,有必要考虑到发展,环境,经验,社会和意愿等因素。 (例如,社会遗传学家已经记录了基因在与同伴的行为中的间接作用,表明一个人的外表可以影响特定社会群体的接受或拒绝(Ebstein 2010)。
现代遗传学知道基因会影响个人的兴趣范围及其动机,因此会间接影响行为。 尽管基因可以因此诱使一个人采取某些行为,但是它们具有直接控制行动的能力,而不论其他各种因素如何,却非常非常不可能。 他们对行为的影响更加微妙,取决于环境因素的影响...”(迈耶2016).
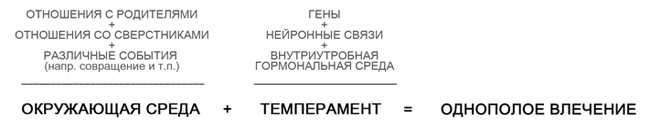
影响取向的先天因素包括性格软弱、情绪敏感、害羞、被动等。研究人员自己的研究结果被用于“LGBT*+”运动活动人士的言论,但他们不敢断言同性恋充其量是由基因决定的,他们认为同性吸引力与以下因素的组合有关:生物和环境因素,其中后者起主要作用。我们主要在好莱坞电影、顶级脱口秀、歌曲或社交网络评论中听说同性恋是“天生的”。然而,科学界几乎没有真正的研究人员可以说他们已经找到了同性恋吸引力的遗传或任何其他生物学原因。
旨在确定基因(特别是在Xq28站点上)是否存在与同性性欲相关的研究。 由V.Lysov(2018)编译
| 来源和 取样 |
方法 分析 |
根据公布结果 | 是否有证据表明Xq28标记与同性恋之间存在关联? | 其他结果 |
| 迪恩·哈默(Dean Hamer)等。 Xnumx 40个家庭,每个家庭由一个同性恋先证者和从他的亲戚中选择的同性恋者组成 |
连锁遗传研究 | 在33家族的40病例中,位于X染色体q28位点的遗传标记重合 | 有条件但是,方法和解释遭到同事的批评: 男爵1993; 池1993; 福斯托-斯特林等。 Xnumx; 夏普1993; 拜恩xnumx; McLeod 1994; 诺顿1995, 海默本人涉嫌伪造: 摩根xnumx | - |
| 詹妮弗·麦克(Jennifer Macke)等人。 Xnumx 36个家庭,每个家庭由一个同性恋先证者和他的亲戚组成,其中至少有一个同性恋兄弟 |
搜索候选基因-雄激素受体基因(X染色体) | 在样本中未发现具有统计学意义的关系 | - | 与雄激素受体基因(X染色体)无关 |
| 胡(Stella Hu)等人。 Xnumx (科学小组院长哈默) 33个家庭,每个家庭由一个同性恋先证者和他的亲戚组成,其中至少有一个同性恋兄弟 |
连锁遗传研究 | 在22家族的32病例中,位于X染色体q28位点的遗传标记重合 | 有条件参见Hamer 1993 | - |
| 乔治·赖斯等。 Xnumx 46个家庭,每个家庭由一个同性恋先证者和他的亲戚组成,其中至少有一个同性恋兄弟 |
连锁遗传研究 | X染色体q28区域上的遗传标记不匹配 | 没有 | - |
| 迈克尔·杜普雷(Michael DuPree)等。 Xnumx (科学小组院长哈默) 144个家庭,每个家庭由一个同性恋先证者组成,他们至少有一个同性恋兄弟 |
搜索候选基因-芳香化酶基因CYP15(15染色体) | 在样本中未发现具有统计学意义的关系 | - | 与芳香酶基因CYP15(15-I染色体)无关 |
| Mustanski等。 Xnumx (科学组院长哈默) 146家族(包括Hamer 1993和Hu 1995研究的家族),每个家族由一个同性恋先证者组成,并且至少有一个同性恋兄弟 |
连锁遗传的全基因组研究 | 在样本中发现与7染色体上的标记具有统计学意义的关联,并且据作者称,8和10染色体上的标记“接近可能的显着性标准”。 | 没有 | 根据Lander和Kruglyak(7)的标准与1995染色体上的标记进行通讯,这是LOD的最佳指标* 等于xnumx |
| Sreeram Ramagopalan等。 Xnumx (乔治·赖斯科学团队) 55个家庭,每个家庭由一个同性恋先证者组成,他们至少有一个同性恋兄弟 |
连锁遗传的全基因组研究 | 在样本中未发现具有统计学意义的关系 | 没有 | 根据Lander和Kruglyak(7)的标准,未在1995染色体上发现与标记的关联 |
| Wang Binbin等。 Xnumx 一群Xnumx同性恋男子和对照组Xnumx异性恋男子 |
搜索候选基因-声波刺猬(SHH)基因(7染色体) | 在样本中未发现具有统计学意义的关系 | - | 在rs9333613基因位置的突变比例中发现了统计学上显着的族间差异,这被作者解释为“该基因突变与同性吸引之间存在可能的联系” |
| Emily Drabant等。 Xnumx 根据克莱因问卷调查,被确认具有性欲和自我认同感的7887名男性和5570名女性(与血缘关系无关) |
全基因组关联搜索 | 在样本中未发现具有统计意义的显着性(5×10⁻⁸)关联 | 没有 | 未发现具有统计学意义的关联 |
| 桑德斯等。 Xnumx 384个家庭,每个家庭由一个同性恋先证者组成,他们至少有一个同性恋兄弟 |
连锁遗传的全基因组研究 | 在样本中发现与8染色体上的标记具有统计学意义的关联,并且与Xq28可能关联 | 有条件的:根据Lander和Kruglyak(1995)的标准,Xq28标记的最佳LOD指标等于2,99,它对应于假定值(“建议意义”) | 根据Lander和Kruglyak(8)的标准与1995染色体上的标记进行通讯;最佳LOD得分为4,08 |
| 桑德斯等。 Xnumx 一组1077同性恋者和1231异性恋者(与Sanders等人2015相同) |
全基因组关联搜索 | 在样本中未发现具有统计意义的显着性(5×10⁻⁸)关联 | 没有 | 没有发现统计学上显着的关系。 作者指出,对于13和14染色体上的标记,获得了接近显着的值 |
* LOD =赔率的多点对数,请参阅Nyholt DR。 不是所有的LOD都相等。 我是J Hum Genet。 2000 8月; 67(2):282 – 288。 http://doi.org/10.1086/303029。 遗传研究中具有统计意义的LOD≥3,
正如一位美国博主恰如其分地指出,“……试图从生物学角度解释同性恋就像iPhone——每年都会推出新款……”(Allen 2014 )。最终,或许从那些宣扬同性恋倾向的人的角度来看,“可能天生就有倾向”这一口号具有完全不同的宣传效果。
人们曾试图发现所谓的“酗酒基因”(The Recovery Village 2017;NIAAA 2012)和“谋杀基因”(Davis 2016;Parshley 2016),但与“同性恋基因”一样,至今仍未找到任何证据支持“人天生如此”的说法。任何理智的人都不会用基因的影响来为酗酒和谋杀辩护——毕竟,这些现象是由选择决定的,而非预先注定的。“同性恋基因”理论的先驱迪恩·哈默显然也拥有卓越的商业才能,他巧妙地利用了社会潮流。在1993年发表文章后不久,哈默便出版了《激情科学:寻找同性恋基因与行为生物学》一书,该书在LGBT+群体中引起了轰动(Hamer 1994),并为他带来了丰厚的利润。十年后,海默出版了《上帝基因:信仰如何由基因决定》(Hamer 2004)一书,再次引起轰动。书中他阐述了自己的观点:宗教人士实际上是基因突变体(V.L.:有趣的是,这种选择性对待两种基因假说的方式截然不同:同性恋倾向的基因决定被正面地视为理所当然,而基因与宗教之间的联系则被负面地视为一种突变)。当然,迄今为止,海默的假说尚未得到证实,但他的理论在LGBT*+群体中却广受欢迎;美国《时代》杂志甚至为此专门制作了一期封面。
迪恩·哈默随后离开了学术界,专注于社会和政治活动:他和他的“丈夫”约瑟夫·威尔逊(《纽约时报》2004 年)一起创立了电影工作室“QWaves”,专门制作面向 LGBT*+ 运动的作品(《赫芬顿邮报》2017 年)。
著名的生物学家和科学普及者理查德·道金斯(Richard Dawkins)从哲学上描述了同性恋基因决定论的假设:
“……有些环境因素很容易改变,有些则很难改变。想想我们与童年口音的联系有多么紧密:一个成年移民终生都会被贴上‘外国人’的标签。这方面的决定性远比大多数基因的作用要强得多。如果一个孩子曾受到某种特定环境因素的影响,例如在修道院接受宗教教育,那么他日后克服这种影响的统计概率是多少,这将非常有趣。同样,如果一个男性的X染色体Xq28位点携带某个特定基因,那么他最终成为同性恋的统计概率是多少,也将非常有趣。仅仅证明存在一个‘导致’同性恋的基因,几乎完全忽略了这种概率的意义。基因并非决定性的唯一因素……”(道金斯,2004,第104页)。
俄罗斯性别学中最杰出的人物之一,乔治·斯蒂芬诺维奇·瓦西尔琴科教授在谈到同性恋倾向形成的原因时指出:
“……然而,大脑分化紊乱和激素变化并非同性恋倾向发展的先决条件,而是为性自我意识和性别角色行为的扭曲奠定了基础,从而增加了同性恋的风险。神经内分泌支持仅仅是性欲的能量成分。同性恋的发展也受到一般性变态所特有的病因和发病机制的促进……”(Vasilchenko 1990,第430页)。
男性同性恋遗传因素的假设,为女性提供进化优势
值得一提的是意大利研究人员的怪异假设,据他们称, “不适合任何现有的同性恋基因模型”。 同性恋是由基因引起的,这与自然选择的原则背道而驰,根据自然选择的原理,阻碍实现后代生产所必需的异性功能的基因载体的数量应稳步减少,直到完全消失。 但是,如图所示 统计,自认为是同性恋的人数随着每一代人的增加而增加。 原因很明显:同性恋不是遗传驱动的,而是不想忍受明显的Camperio-Ciani和他的同事提出了一个复杂的解释,该解释本来可以应对“达尔文悖论”。 他们的假设表明存在一定的“ X染色体因子”,该因子通过母系传播,可以增加男性和女性的男性间性交(男性对男性的性吸引力),从而导致女性的生育力增加,从而弥补了男性的生育力下降(Camperio-Ciani 2004).
如果科学家找到适当的补偿水平,则该假说可以声称具有一定程度的可信度-例如,如果有异性后代的母亲有2的孩子,而有异性后代的母亲有4的孩子。 实际上,差异没有多大关系:平均而言,第一个孩子的2,07和第二个孩子的2,73-多了34%,尽管事实上同性恋和异性恋的生殖水平几乎相差5倍:分别是0,12和0,58(在383上)减少%)(伊玛娜(Eemmola xnumx))。 研究人员通过以下事实解释了异性恋者的异乎寻常的低生育力:作为对照组,他们被认为与同性恋先证者尽可能相似,因此他们中大多数未婚。 但是,即使我们采用这些没有代表性的数据,事实证明,要获得足够的补偿,同性恋后代的母亲将需要超过7个孩子。此外,前代(祖父母)的生育率也没有发现显着差异,这也与遗传论点不一致。转让。
为了解释他们的发现,作者指出,同性恋者往往会高估其家庭中非异性恋者的数量,而异性恋者则往往会低估这一数量,这可能是导致结果差异的原因。他们还认为,生育率的差异可能由生理或行为因素解释,例如较低的堕胎率或更容易找到伴侣。最后,作者强调,母亲生育率的提高只能解释他们样本中男性性取向差异的不到21%。
“这与理论和实证研究相符,这些研究表明,个人经历是性行为和自我认同的重要决定因素。母亲同性恋比例较高可能源于文化因素而非遗传特征。在许多社会,例如意大利北部,母亲会花大量时间陪伴孩子,尤其是在孩子幼年时期,这对性身份和性取向的发展至关重要。这表明,母亲及其家庭可能是孩子某些行为和态度的主要来源,包括与未来性偏好和行为相关的特征”(Camperio-Ciani 2004)。
在进行了三项研究之后,作者不得不承认,他们的数据“不足以确定所提出的X染色体因素在多大程度上导致或甚至使男性倾向于同性恋或双性恋”(Ciani 2009)。简而言之,这些研究对理解同性恋倾向的起源毫无贡献。
捷克研究人员于 2024 年在《性行为档案》杂志上发表论文,终结了这种关于同性恋是天生的“证据”论调:
对于男性,除同性恋男性的祖母生育率较高外,我们没有获得显著结果,但这种影响的程度非常小。对于女性样本,我们记录到女同性恋者的父母生育率较低。与我们的预期一致,同性恋男性和女同性恋者的生育率均低于异性恋者。我们的结果与近期研究一致,这些研究也不支持性别基因拮抗假说。
2019年8月30日,发表在著名科学期刊《科学》上的史上规模最大的基因研究,基于约50万人的样本发现,超过99%的同性恋行为是由社会和环境因素决定的。加州大学遗传学研究所教授大卫·柯蒂斯表示:“这项研究清楚地表明,根本不存在所谓的‘同性恋基因’。人类群体中没有任何基因组合能够显著影响性取向。几乎不可能通过基因组来预测一个人的性行为。”
第二部分:激素?
除了遗传学的影响之外,LGBT*+运动的积极分子还指出,所谓的宫内影响是同性恋吸引力的生物起源的假定机制。据了解,胎儿在母亲子宫内时,某些因素(激素或免疫抗体)作用于胎儿,扰乱其正常发育过程,进而导致同性恋欲望的产生。
为了验证激素对性取向形成的影响这一假设,研究人员正在研究产前激素水平与幼儿早期身体发育以及男孩或女孩典型行为发展之间的关系。当然,出于伦理和实际原因,目前尚无法在人体上进行产前激素失衡的实验建模,因为激素紊乱会导致显著的解剖和生理异常。这只能在实验动物身上进行。然而,仍有一定比例的人天生患有激素相关的疾病——性发育障碍(DSD),这部分人群为研究激素失衡与行为之间的关系提供了契机。首先,有必要简要概述产前激素影响的主要方面。
人们认为,胎儿发育成熟期间对激素环境最为敏感。例如,已知男性胎儿接触睾酮的高峰期出现在妊娠8至24周,之后从出生到大约三个月大时再次出现(Hines 2011)。在整个发育成熟期,雌激素由胎盘和母体循环系统供应(Albrecht 2010)。动物研究表明,不同激素的敏感期可能不止一个,一种激素的存在会影响另一种激素的作用,而且这些激素受体的敏感性也会影响它们的活性(Berenbaum 1998)。胎儿性分化本身就是一个极其复杂的系统。
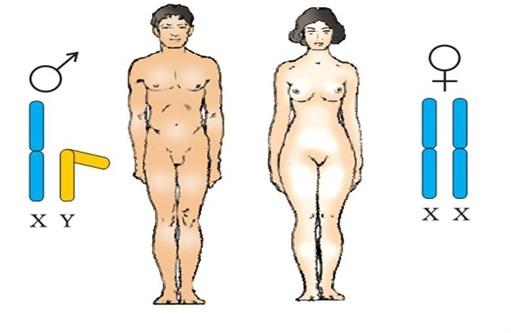
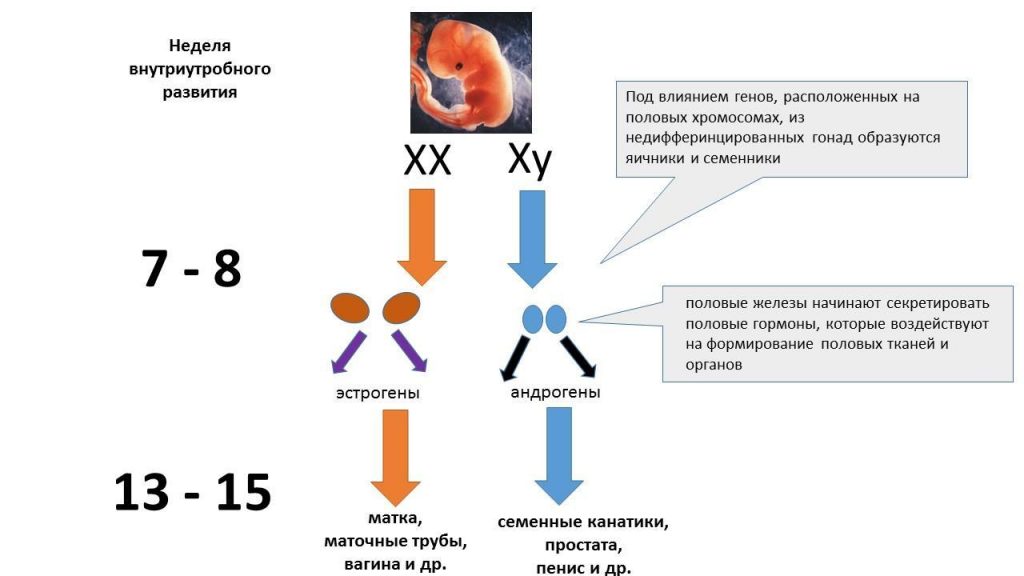
在这一研究领域,睾酮、二氢睾酮(一种睾酮代谢产物,效力比睾酮更强)、雌二醇、孕酮和皮质醇等激素尤为引人关注。激素对子宫内胎儿发育的影响通常分阶段进行。最初,胚胎仅在染色体组成上有所不同——XX 或 XY——它们的性腺(生殖腺)是相同的。然而,根据染色体组合的不同,XY 携带者很快开始形成睾丸,而 XX 携带者开始形成卵巢。一旦性腺分化完成,它们就开始产生性别特异性激素,这些激素决定着外生殖器的发育和形成:睾丸分泌的雄激素促进男性外生殖器的发育,而女性体内雄激素的缺乏和雌激素的存在则导致女性型外生殖器的发育(Wilson 1981)。
性分化图。作者:V. Lysov。雄激素和雌激素失衡(由基因突变和其他因素引起),以及它们在胎儿发育某些重要时期的存在或缺失,都可能导致性发育障碍。
先天性肾上腺皮质增生症 (CAH) 是研究最为深入的性发育障碍之一,它与编码皮质醇合成酶的基因突变有关 ( Speiser 2003 )。这种病理会导致皮质醇前体(皮质醇和雄激素共用一个前体)过量,而雄激素正是由这些前体形成的。因此,女孩出生时八个生殖器会出现不同程度的男性化,具体程度取决于基因缺陷的严重程度和雄激素过量的程度。严重的男性化病例,伴有严重的生理功能缺陷,有时需要手术干预。激素治疗用于中和雄激素过量的影响。有研究指出,患有 CAH 的女性更容易出现同性恋倾向 ( Speiser 2009 ),而且病情较重的 CAH 患者比病情较轻的患者更容易出现非异性恋倾向 ( Hines 2011 )。
此外,患有雄激素不敏感综合征的男性也会出现性发育障碍。雄激素不敏感综合征患者的睾丸通常能产生雄激素睾酮,但睾酮受体功能异常。出生时,生殖器表现为女性特征,因此被当作女孩抚养。患儿体内的睾酮会转化为雌激素,导致女性第二性征的发育(Hughes 2012)。这种病理只有在青春期才会被发现,此时月经不会如期到来,这些“女性”自然也无法生育,就像患有先天性肾上腺皮质增生症(CAH)的“男性”一样。
还有一些性发育障碍会影响某些遗传男性(即XY基因型个体),在这些疾病中,雄激素缺乏是由于参与从睾酮合成二氢睾酮或从其前体激素合成睾酮的酶缺乏所致。患有这些疾病的个体出生时伴有不同程度的生殖器畸形(Cohen-Kettenis 2005)。
显然,在这些例子中,同性恋的吸引力和/或对异性的特定行为选择与功能和形态病理学有关。 但是,在同性恋者中未检测到此类病理。 经验性观察不支持这样的假设,即荷尔蒙失衡仅导致同性恋偏好的形成(即影响行为特征),而绝不影响形态和功能特征。
已经进行了各种尝试来识别与同性恋偏好相关的任何解剖学或功能特征。让我们考虑一下 LGBT*+ 运动活动人士引用的研究。
西蒙·莱维研究
已有数项研究探讨了基于性取向的神经生物学差异。第一项研究由神经生物学家西蒙·勒维于1991年发表(LeVay 1991)。勒维利用已故个体的尸检结果进行研究。他将研究对象分为三组:六名“异性恋”女性、19名死于艾滋病的“同性恋”男性和16名“异性恋”男性(这些参数加引号是因为死者的性取向很大程度上是推测性的)。
在每个组别中,LeVay测量了大脑中一个特定区域——前下丘脑间质核(INAH-3)的大小<sup> 9</sup>。下丘脑包含多个这样的核团,大小从0.05到0.3 mm<sup>3</sup>不等(Byne 2001 ),编号为1、2、3和4。通常情况下,INAH-3的大小取决于体内雄性激素睾酮的水平:睾酮水平越高,INAH-3越大。LeVay发现,同性恋者的INAH-3明显小于对女性有相似性吸引力的男性。由于人类结构由基因决定,LeVay假设,如果INAH-3的大小与性吸引力相关,那么“……性吸引力是由大脑结构决定的……”,因此基因与性吸引力相关。
值得注意的是,勒维全身心投入到这项工作中,并非常期待能够取得这样的成果。他的同性恋伴侣理查德·赫雷西因艾滋病去世后,勒维一度陷入严重的抑郁(《新闻周刊》1992年,第49页)。他的论文发表后引起轩然大波,他告诉记者:“我觉得如果我一无所获,我就彻底放弃科学”(《新闻周刊》1992年,第49页)。
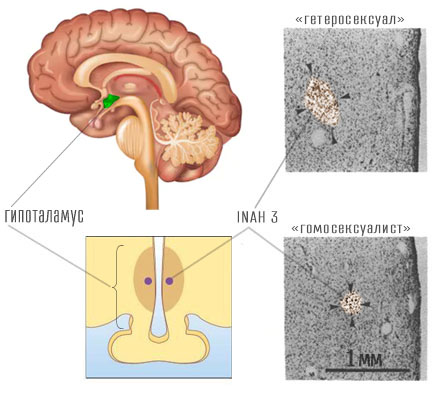
勒维的研究存在诸多方法论缺陷,他本人也不得不反复指出这些缺陷,但媒体却固执地视而不见。那么,勒维究竟发现了什么,或者说,他没有发现什么呢?他没有确凿地发现INAH-3大小与性取向之间存在关联。早在1994年,纽约研究员威廉·拜恩就对同性恋具有遗传因素的说法提出了严厉批评(Byne 1994):首先,研究对象的选择存在问题。勒维并不确切知道他研究的对象在生前有过怎样的性取向。众所周知,艾滋病晚期患者的睾酮水平会很低,这既是疾病本身的影响,也是治疗副作用造成的(Gomes 2016)。勒维的数据使得我们完全无法确定INAH-3在出生时的大小,也无法排除它在生命过程中可能缩小的可能性。所有被勒维归类为“同性恋者”的受试者都死于艾滋病并发症。勒维本人在同一篇文章中也做出了免责声明:
“……结果无法让我们得出结论,INAH 3 大小是个人性取向的原因还是结果,或者 INAH 3 大小和性取向是否受到某些第三个未指明变量的相互影响……”(LeVay 1991,第 1036 页)。
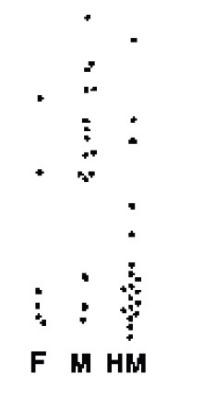
其次,没有任何依据可以自信地断言勒维发现了什么。研究人员露丝·哈伯德和伊莱贾·沃尔德在他们的著作《打破基因神话:科学家、医生、雇主、保险公司、教育工作者和倡导者如何操纵基因信息》中,不仅质疑了勒维对其研究结果的解读,甚至质疑他是否真的发现了任何显著差异(哈伯德,1999,第95页)。尽管勒维指出,在他认定为同性恋的群体中,INAH-3基因的平均大小小于在他认定为异性恋男性的群体中的平均大小,但他的研究结果表明,两组人群的INAH-3基因最大值和最小值范围完全相同。统计学中有一个概念叫做正态分布。简而言之,正态分布定律指出,拥有某种性状的大多数人的参数值处于平均范围内,而只有少数人的参数值处于极端值。也就是说,100 人中,80 人身高 160-180 厘米,10 人身高不足 160 厘米,10 人身高超过 180 厘米。
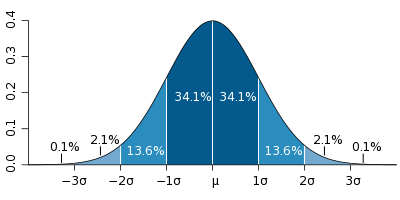
根据统计计算规则,要确定两组受试者之间的统计学显着差异,就无法比较不具有正态分布的参数。 例如,如果在160 cm以下的一组人群中,不是10%,而是40%或50%。 在LeVay的研究中,INAH-3对于某些异性恋男人和大多数同性恋者来说是最小的尺寸,对于某些同性恋者和大多数异性恋男人来说是最大尺寸的。 因此,对于每个人来说,绝对不可能说出INAH-3的大小与性行为之间的关系。 即使可以令人信服地证明大脑结构存在任何差异,其重要性也将与发现运动员的肌肉比普通人的肌肉更大的发现相提并论。 基于这一事实,我们可以得出什么结论? 一个人在运动时会发展出更大的肌肉,还是先天性倾向于更大的肌肉使一个人成为运动员?
第三,LeVey没有透露女性的性行为与INAH-3的关系。
LeVey在1994采访中说:
“……需要强调的是,我并未证明同性恋是先天性的,也没有找到遗传原因。我也没有证明同性恋者是‘天生的’——这是人们在解读我的研究时最常犯的错误。我也没有在大脑中发现所谓的‘同性恋中心’……我们并不知道我发现的这些差异是与生俱来的,还是后天形成的。我的研究并未探讨性取向是否在出生前就已经确定……”(Nimmons 1994)。
LeVey的保留非常重要,因为神经科学领域的任何专家都知道这种现象,例如神经可塑性-神经组织在各种行为因素的影响下在一生中改变其功能和结构的能力。
2000年,一群英国科学家发表了一项关于伦敦出租车司机大脑的研究结果(Maguire 2000)。研究发现,出租车司机大脑中负责空间协调的区域明显大于对照组(非出租车司机)的个体。此外,该区域的大小与出租车驾驶年限直接相关(Maguire 2000)。如果研究人员的目的是为了达到某种政治目的,他们可能会说:“应该给这些出租车司机配备右舵车,并且为了他们的利益,应该把他们工作区域的交通规则从左舵改为右舵——毕竟,他们天生就是这样的!”
迄今为止,已有大量令人信服的证据表明,脑组织(尤其是下丘脑)具有可塑性(Bains 2015;Sale 2014;Mainardi 2013;Hatton 1997;Theodosis 1993)。脑形态会受到行为因素的影响而发生变化(Kolb 1998)。例如,脑结构会在怀孕后(Hoekzema等,2016)、太空旅行后(van Ombergen等,2018)以及规律的体育锻炼后(Nokia等,2016)发生改变。
因此,为证实LeVey本人在1994年所说的话,他对1991年的研究对同性恋与生俱来的假设的贡献为零。
在《当代科学》杂志的一篇评论文章中,对 LeVay 的工作以及其他神经解剖学假设进行了更详细的批判(Mbugua 2003)。
Levay研究的可复制性
LeVay的研究结果从未被重复验证。2001年,纽约的一组研究人员进行了一项类似的研究——他们比较了与LeVay研究相同的下丘脑区域,但数据更为全面,受试者分布也更为均衡(Byne 2001)。他们发现INAH-3的大小与同性恋倾向之间没有相关性。作者得出结论:“……仅凭INAH-3的体积无法可靠地预测性取向……”(Byne 2001,第91页)。
后来,人们尝试探究性倾向与大脑其他区域之间的关系。2002年,心理学家拉斯科及其同事发表了一项关于大脑另一区域——前连合的研究(Lasco 2002)。该研究表明,前连合区域的活动并无显著差异,无论性别或性吸引力的性质如何。其他旨在探究异性恋者和同性恋者大脑结构或功能差异的研究,由于其固有的局限性,大多未能取得显著成果:2008年,部分此类研究的结果被总结在《美国国家科学院院刊》(PNAS)的一篇文章中(Swaab 2008)。例如,一项研究利用功能磁共振成像技术,测量受试者观看男性和女性照片时大脑活动的变化。研究发现,观看女性面孔会增加异性恋男性和同性恋女性的丘脑和眶额皮质的活动,而这些区域对同性恋男性和异性恋女性的男性面孔反应更强烈(Kranz 2006)。考虑到同性恋倾向的病因,异性恋女性和同性恋男性的大脑对男性面孔有特异性反应,而异性恋男性和同性恋女性的大脑对女性面孔有特异性反应这一事实,其意义并不重大。同样,另一项研究也报告了非同性恋男性和同性恋男性对信息素的不同反应(Savic 2005)。
手指长度
手部第二指(食指)与第四指(无名指)长度之比,通常被称为“2D:4D”比值,在大多数男性和女性中存在差异。一些证据表明,该比值可能受产前睾酮水平的影响,导致睾酮水平较高的男性食指比无名指短(即2D:4D比值较低),反之亦然(Hönekopp 2007)。一些研究者认为2D:4D比值与同性恋倾向有关。然而,将2D:4D比值与性倾向联系起来的尝试并不一致,甚至相互矛盾。
根据一个假设,同性恋者的2D:4D比例可能更高(与异性恋男人的比例相比,女性比例更接近),而另一种假设则表明,产前睾丸激素过多会导致男性化比例降低。同性恋者比异性恋男人好。 还提出了关于由于过度男性化(较低的比率,较高的睾丸激素水平)而导致的女性同性恋倾向的假设。
针对同性恋和非同性恋男女的这一特征,多项比较研究得出了不同的结果。2000年发表在《自然》杂志上的一项研究发现,在720名加州成年人的样本中,同性恋女性右手的2D:4D比值显著低于非同性恋女性,且与非同性恋男性的该比值无显著差异(Williams 2000)。该研究还发现,非同性恋男性和同性恋者的平均2D:4D比值没有显著差异。同年,另一项使用来自英国的较小样本的同性恋和非同性恋男性的研究发现,同性恋者的2D:4D比值较低(即更偏向男性化)(Robinson 2000)。 2003年,一项针对伦敦样本的研究发现,同性恋男性的2D:4D比值低于非同性恋男性(Rahman 2003),而另两项分别针对加利福尼亚州和德克萨斯州样本的研究则发现,同性恋男性的2D:4D值更高(Lippa 2003;McFadden 2002)。同年,一项比较研究纳入了7对同卵双胞胎女性,其中每对双胞胎中都有一位是同性恋;以及5对同卵双胞胎女性,其中两位姐妹均为同性恋(Hall 2003)。在性取向不同的双胞胎中,自认为是同性恋的双胞胎的2D:4D比值显著低于其同卵双胞胎,而性取向一致的双胞胎则没有差异。作者得出结论,这一结果表明“较低的2D:4D比值是产前环境差异造成的”。最后,2005 年一项针对奥地利 95 名同性恋男性和 79 名非同性恋男性样本的 2D:4D 比率研究发现,非同性恋男性的 2D:4D 比率与同性恋男性的 2D:4D 比率没有显著差异(Voracek 2005)。在回顾了多项关于此特征的研究后,作者得出结论:“在考虑种族差异后,还需要更多数据才能确信地得出 2D:4D 比率与男性性欲模式之间是否存在关联的结论。”
眨眼
2003年,一群英国研究人员宣布,他们发现了“令人信服的新证据,证明性吸引力是由人脑介导的”(Rahman 2003)。Katzi Rahman及其合作者声称,他们发现男女对强声刺激的眨眼速度存在差异。研究人员发现,女性的预脉冲抑制(PPI)较弱——即在存在微弱预刺激的情况下,身体对刺激的运动反应减弱<sup> 10</sup>。也就是说,女性眨眼速度比男性快,而同性恋女性眨眼速度比非同性恋女性慢。值得注意的是,首先,该研究的受试者人数较少;其次,他们并未发现同性恋男性和非同性恋男性之间存在差异。尽管如此,研究人员仍然得出结论,认为他们的研究结果证明同性恋是一种先天现象。然而,研究人员也提出了一些注意事项:他们指出,他们发现的差异究竟是由于特定的性吸引力,还是某些性行为的结果,目前尚无定论。他们表示,“……异性恋者和同性恋者之间的神经解剖学和神经生理学差异可能是由生物因素或学习影响造成的……”华盛顿大学的哈尔斯特德·哈里森博士分析了这项研究,并指出其一个主要局限性:测试组的样本量太小(14名同性恋女性和15名异性恋女性,15名同性恋男性和15名异性恋男性)。哈里森总结道,“拉赫曼等人并未提供令人信服的证据来支持同性恋女性的PPI参数与男性相似的结论”(Harrison 2003)。哈里森还质疑了该方法的统计学充分性。
上面讨论的双胞胎研究可以阐明母体激素的影响程度,因为在子宫内发育过程中,同卵双胞胎和同卵双胞胎以相同的方式经历其作用。 在双胞胎研究中一致性指标较弱表明,作为遗传因素的产前激素在性欲的形成中没有决定性作用。 寻找其他影响性欲的荷尔蒙因素的其他尝试也没有定论,其结果的重要性尚未得到理解。
产妇压力的影响
1983年,Günther Dörner及其同事进行了一项研究,旨在探究孕期母亲压力与其子女日后性取向之间的联系。他们调查了200名受访者,了解其母亲在孕期(即受访者自身在子宫内发育期间)可能经历的压力事件(Dörner 1983)。许多事件都与二战后的社会动荡有关。在报告其母亲孕期经历中度至重度压力的男性中,65%为同性恋,25%为双性恋,10%为异性恋。然而,后来的研究发现,这种相关性要么小得多,要么根本没有显著相关性(Ellis 1988)。 2002 年,Hines 及其同事进行了一项前瞻性研究,探讨了性欲特异性与妊娠中期和晚期产前压力之间的关系。研究发现,母亲在怀孕期间的压力与女儿在 42 个月大时表现出的男性典型行为“只有很小的关系”,与儿子表现出的女性典型行为“完全没有关系”(Hines 2002)。
第三部分:免疫疾病?
老大哥效应
“哥哥效应”(EBE)或“兄弟姐妹出生顺序效应” 11——这个术语是由加拿大裔美国研究人员雷·布兰查德和安东尼·博加特提出的——是指,根据一些观察,与正常的异性恋男性相比,同性恋恋童癖者、同性恋者和强奸犯的哥哥数量更多,但姐姐的数量没有那么多(Blanchard 1996;Bogaert 1997;Blanchard 1998;Lalumiere 1998;Blanchard 2000;Cote 2002;MacCulloch 2004;Blanchard 2018)。
关于 (1) ESB 是否真的存在,以及 (2) 如果存在,其原因究竟是生物学原因还是社会原因,仍然存在公开的争论(Zietsch 2018;Gavrilets 2017;Whitehead 2018)。
尽管ESB及其原因领域的结果相互矛盾,但一些研究人员和公众人物试图为同性恋找到生物学上的理由,因此明确接受ESB的生物学解释,以至于他们完全排除了任何其他可能的解释(成长的影响等) .)。
⚡️2023年新增:
维也纳大学心理学系的科学家对老大哥效应的数据进行了数学处理。 他们的结论是,经过适当的分析,哥哥的数量和同性恋倾向之间的具体关联很小,程度不同,而且显然不是男性特有的。 此外,现有的科学证据 夸张的 由于小型研究的影响。⚡️2024年新增:
一项新研究的结果表明,之前提出的用以解释哥哥与后出生男孩同性恋之间联系的母体免疫假说可能需要被摒弃,或者需要扩展以解释女孩的研究结果。
ESB假设的缺点
ESB并非无条件公理,出于多种原因,其存在的事实是正在进行的科学讨论的主题。
首先,并非所有研究都发现了这种效应。Brendan P. Zietsch 指出,ESB 假说的支持者在其分析中仅纳入了已发表的、与其观点一致的研究结果,而忽略了那些未发现 ESB 的研究、简报、论文和会议报告(Zietsch 2018 )。鉴于在七个概率样本中,有六个样本未证实 ESB 的存在( Bearman 2002;Bogaert 2005 , 2010;Francis 2008;Frisch 2006;Zietsch 2012 ) ,这个问题尤为重要。前文提到的 LGBT*+ 活动家 Simon LeVay 也在其著作中回顾了未发现 ESB 的研究(LeVay 2016)。
其次,那些检测到ESB的研究基于可疑的抽样方法。 ESB假设的支持者将这样的标准应用于人口分析,从而排除了所有可用的概率样本(即,根据研究的自变量(在这种情况下为性吸引)随机选择的样本)。 这意味着荟萃分析仅包括同性恋者在总人口中所占比例与总同性恋者所占比例不相似的样本(例如,当年2018的Blanchard分析样本平均包含51%的同性恋者,而在总人口中,根据各种消息来源,最大值为2 – 3%)。 在这种非随机样本的情况下,选择同性恋和异性恋群体的风险增加,这不仅在预测变量上有所不同。 Blanchard 1表2018显示,荟萃分析中包含的大多数样本均来自极不具代表性的人群:性罪犯,变性者,恋童癖者,精神病患者等。值得注意的是,本文中没有讨论这些样本选择问题。 相反,布兰查德(Blanchard)的纳入标准的应用方式是排除具有概率样本的大型研究(其中未确认ESB)。 在荟萃分析中,各个研究之间的效应大小差异很大,这表明,如何选择研究分组的事实对ESB有很大影响。 这增加了样本特征创建ESB的可能性,特别是考虑到大概率样本根本不显示ESB的可能性。
第三,另一个方法论问题是,用于寻找企业社会责任(ESB)的分析方法似乎存在偏差,旨在检测预期效应。例如,一些研究人员使用单侧统计检验来估计效应(例如,Bogaert 2005;Poasa 2004;Purcell 2000),或者通过声称应该使用单侧检验来解释其他研究人员并未发现显著的ESB的结果(Blanchard 2015)——尽管众所周知,单侧检验仅应在极少数不符合元分析条件的情况下使用(Lombardi 2009)。研究人员Bartlett写道:
“鉴于同性恋男性在人群中相对较少,很难选择同性恋男性和异性恋男性的平衡群体进行研究。从不同家庭规模的人群中抽取同性恋者和异性恋者样本,在测量ESB时会造成问题。如果样本包含来自较大家庭的同性恋者,则研究检测到所有类型兄弟姐妹(而不仅仅是哥哥)的虚假效应的可能性会增加;而如果样本包含来自较大家庭的异性恋男性,则这种效应会消失……”(Bartlett 2018)。
第四,ESB 完全基于相关性分析的结果。发现实际的相关性等同于发现造成这些相关性的原因。任何相关性都需要一个机制解释,而这一点尚未实现(Gavrilets 2017)。
第五,ESB并非普遍适用。ESB无法解释没有哥哥的男性的同性恋倾向,也无法解释有同性恋哥哥的弟弟为何没有同性恋倾向,更无法解释双胞胎兄弟性取向的差异¹²。ESB在双性恋男性中并未观察到。双性恋倾向可以理解为同时对异性和同性产生性吸引力;因此,在ESB范式下,双性恋男性的ESB应该低于同性恋男性,但高于异性恋男性。然而,Bogaert(2006)的一项研究表明,双性恋者和同性恋者的ESB水平相同。McConaghy等人(2006)对“以异性恋为主的个体”(同性吸引力较弱的个体)进行了ESB研究,并与完全异性恋的对照组进行了比较。研究发现,ESB假设适用于男性和女性。此外,男性中也观察到了姐姐效应,尽管强度较弱。作者认为,他们的研究结果表明,与社会因素相比,生物学因素导致的性取向障碍(ESB)的可能性较小。据估计,ESB假说仅能解释17%的同性恋倾向案例,且仅限于男性(Cantor 2002)。ESB假说无法解释女性的同性恋倾向。ESB假说的支持者曾多次尝试在具有同性恋倾向的女性中验证这一假说,但均未成功(Blanchard 2004)。
第六,ESB在实际的文化-种族预测模型中并不适用。如果我们假设ESB存在,根据其范式,我们可以预测(基于Bogaert 2004的模型),同性恋倾向男性的比例在以下群体中较高:(a)宗教家庭,这类家庭生育子女的可能性较高;(b)传统上以大家庭为特征的东方和穆斯林文化;而在生活水平较高的西方社会,这类社会的生育率显著低于东方社会(Caldwell 1997)。这种趋势,说得委婉些,与现实不符。
ESB假设
一些研究提出了几种解释ESB的假设(James 2004),其中主要有两种:(1)生物学产前影响(母体免疫假说)和(2)社会心理产后影响(环境条件的影响)。下文将分别探讨这两种假设。
产妇免疫假说
布兰查德和博加特提出了母体免疫冲突假说,作为ESB的生物学依据。该假说认为,女性免疫系统能够产生针对男性胎儿某些“男性抗原”的抗体,并且这些抗体会在每次怀上男性胎儿的妊娠过程中积累,从而增加每个后续男孩发生宫内免疫损伤的风险(Blanchard 1996)。母体免疫冲突假说试图通过类比Rh血型不合妊娠来解释男孩同性恋倾向的形成(Bogaert 2011)。
恒河猴冲突妊娠是由胎儿中存在血细胞上编码特定蛋白质的基因以及母亲中不存在该基因引起的病理状况(也就是说,本例中母亲为Rh阴性而胎儿为Rh阳性)。 在Rh阴性胎儿的Rh阴性母亲第一次怀孕期间,胎儿的细胞会穿透母亲的血流并引起免疫反应-形成针对血细胞的抗体。 随后在这位母亲中出现Rh阳性胎儿时,来自母亲血流的抗体会渗透到胎儿血液中并破坏其红细胞,从而在出生时引起溶血和发黄。 这就是为什么妇产科医生控制怀孕的母亲和孩子的父亲的Rh状态。
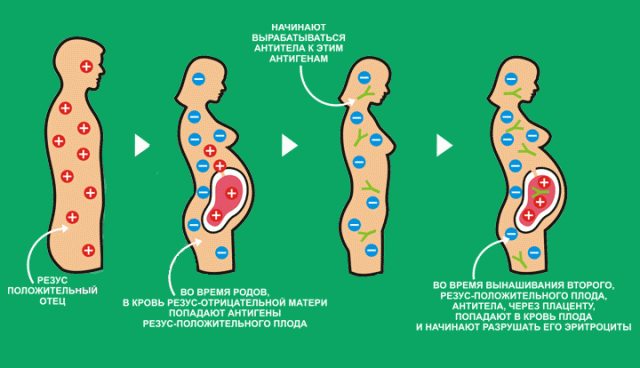
Blanchard和Bogert假说基于与Rh冲突怀孕相同的原理。 在这种情况下,引起抗体形成的因素(在上述例子中Rh阳性)是存在游动染色体,即胎儿的男性。 Y染色体已编码已经存在于胚胎发育最早阶段的雄性胎儿(但女性中没有!)中蛋白质和激素的形成。 根据讨论的假设,携带“雄性抗原”的胎儿组织颗粒进入母亲的血液并引起抗体的形成,据推测,在随后的雄性胎儿怀孕期间,这种抗体穿过血脑屏障,穿透胎儿的大脑并攻击含有“雄性抗原”的特定神经细胞。据称是“通过阻止男性类型阻止胚胎脑的发育”,其结果是男孩天生就有“女性大脑”,据称他是同性恋或变性人。 男性胎儿每次新怀孕,母亲的免疫反应性都会增加,因此,据称每个哥哥都会增加发生偏离的可能性。
根据布兰查德和博格特的假说,宫内免疫损伤的确证是有哥哥的同性恋男子出生时体重的减少。
产妇免疫假说的缺点
William H. James (2004)对母体免疫冲突假说的主要原则进行了批判性考察。
首先,认为孕妇在孕期仅对男性胎儿的特定抗原产生免疫反应,而对女性胎儿的特定抗原不产生免疫反应的假设,说得委婉些,也值得商榷。母亲可能对男性和女性胎儿都产生免疫反应,也就是说,在这种情况下,免疫反应并非由“男性抗原”引起,而是由特定的父系抗原引起,此类病理已被深入研究(Dankers 2003)。其中三种反应最为常见:(a)前述的红细胞生成障碍(RCD),其主要影响表面Rh阳性的胎儿红细胞,发生率为10-20%;(b)新生儿同种免疫性血小板减少症,主要影响血小板,发生率为4%或12%(若考虑无症状病例)(Turner 2005);新生儿中性粒细胞减少症,主要影响中性粒细胞,发生率为4%(Han 2006)。在所有这些案例中,这些抗原都特异性地存在于父亲身上,而非男性共有抗原。它们会在同一父亲所生的后续子女(无论性别)体内产生。在分娩过程中,胎儿血液(来自脐带、胎盘等)与母亲的免疫系统(由于外生殖器、子宫内膜等受到创伤)接触时,这些抗原会影响血液成分(而非特定器官和组织)。
人们认为,母体同种免疫抗体与其他抗体一样会进入母乳(Gasparoni 1992)。例如,母体针对Rh因子的同种免疫抗体进入母乳后,可能导致新生儿溶血病(Beer 1975)。同样,人们可能会认为,含有针对“男性抗原”的假定抗体的母乳会被后出生的兄弟姐妹难以耐受,从而导致母乳喂养困难、过早停止以及过敏性结肠炎。然而,医学文献回顾却呈现出相反的景象:出生顺序与母乳喂养持续时间无关,甚至呈正相关(Martin 2002)。新生儿过敏性结肠炎的发生率在0,01%至7,5%之间(Hildebrand 2003;Pumberger 2001;Xanthakos 2005),男女均可发生。这些统计数据也包括对牛奶的反应。
让我们重申,从进化论的角度来看,男性胎儿在子宫内对母体的免疫原性是荒谬的。人类作为哺乳动物的系统发育跨越了数百万年。为什么在如此漫长的时期内,人体没有进化出有效的机制来预防这种进化代价高昂的免疫反应?假设在女性怀孕期间(男性胎儿占所有妊娠的50%),女性体内出现免疫反应,对于健康女性而言,这既是常规也是不可避免的过程,这将导致严重的性别失衡和进化问题。系统发育总是导致选择,并最终保留对物种最有利的性状。例如,有大量证据表明,雄性配偶选择与主要组织相容性复合体(MHC)相关(Chaix 2008;Millinski 2006;Wedekind 1995),也就是说,在系统发育水平上,物种过程旨在最大限度地增加 MHC 性状的多样性,并提高后代的生存能力(Williams 2012;Guleria 2007)。
为了支持他的理论,博加特举例说明了Rh血型不合妊娠(RIP)这种病理性免疫反应(Bogaert 2011),它会导致新生儿溶血病。据推测,这种现象(约15%的人口面临风险(Izetbegovic 2013))在进化过程中并未消失。然而,应该考虑到,在人类物种的过去,Rh血型不合妊娠的发生频率要低得多。在现阶段,人类已经经历了混血等进化因素,因此,人类尚未发展出抑制Rh血型不合的天然机制似乎并不矛盾。随着移植学的发展,人类遇到了免疫排斥反应这种以前从未出现过的因素(几乎100%的受者都会出现);因此,人类缺乏抑制这种反应的天然机制也就不足为奇了。对于 RCP 和移植排斥反应,人类作为一个物种,其补偿机制的发展时间还不长13。另一方面,母亲与其 50% 的后代之间免疫不相容性的稳定维持是自相矛盾的。
一般而言,雄性胎儿的某些结构或物质仅具有雄性特有的抗原性似乎令人怀疑。 游离睾丸激素(一种与性激素结合的球蛋白或细胞膜雄激素受体)对母亲没有免疫反应性,因为它们也都存在于女性体内。
其次,假定特定的母源抗体选择性地损害了男性胎儿的大脑(导致其“女性化”),但同时它们不会干扰任何其他大脑功能,也不会影响睾丸(包含更多的Y染色体基因产物) )-坦率地说,是有争议的。
如果确实存在针对“男性抗原”的免疫反应,那么假设的母体抗体将主要攻击睾丸,或者至少会同时攻击睾丸和大脑,因为睾丸中“男性抗原”的含量远高于大脑。已知许多基因是男性特异性的(即位于Y染色体上)(Ginalksi 2004)。这些基因的表达——即信息的读取以及蛋白质和结构的合成——并非主要发生在大脑,而是主要发生在睾丸,因此睾丸才是“抗男性”特异性免疫攻击的主要目标,而非大脑(Ginalksi 2004)。同性恋男性患睾丸异常(如尿道下裂、隐睾、睾丸癌等)的概率会更高,但目前尚未发现睾丸异常与同性恋或性发育障碍(ESD)之间存在关联(Pierik 2004;Flannery 1994)。此外,值得注意的是,患有尿道下裂的男性,尽管在胎儿发育期间睾酮水平较低,但其心理男性气质水平却略高(Sandberg 1995)。人们或许会认为,由于免疫介导的睾丸病变,具有同性恋倾向的个体青春期发育会延迟;然而,大型研究发现,青春期发育的年龄与性取向并无关联(Savin-Williams 2006)。
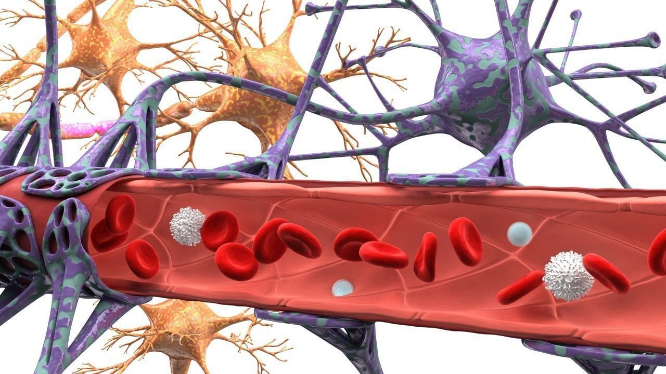
此外,假设母体抗体能够通过血液循环进入胎儿大脑,这是因为血脑屏障(BBB)早在妊娠第四周就已形成(Zusman 2004)。只有当血脑屏障严重受损——其保护功能遭到破坏——时,这些抗体才能穿过血脑屏障,而这会导致严重的脑部神经损伤。然而,如果胎儿血脑屏障正常,即使母体免疫系统出现紊乱,也不会导致新生儿出现神经系统疾病——血脑屏障能够阻止抗体的穿透。一项纳入17283对母子样本的大型研究发现,母体免疫反应性增强与脑瘫、智力低下、惊厥等疾病之间并无关联(Flannery 1994)。
假设抗体以某种方式损伤大脑并导致其女性化,这种假设也站不住脚。在胚胎发育过程中,大脑的解剖学性别差异表现得并不明显,大脑最终的性别形态功能形成发生在青春期,此时假设的免疫效应已不可能发生(Lenroot 2007;Paus 2005)。胚胎大脑中存在性别特异性神经组织的观点本身就非常值得怀疑,并且从未得到令人信服的证实(Lauterbach 2001;Nunez 2003)。磁共振成像扫描显示,新生儿大脑结构仅存在微小的统计学差异,而非明显的性别二分法差异,且两性之间存在显著的重叠(Zanin 2011;Mitter 2015)。
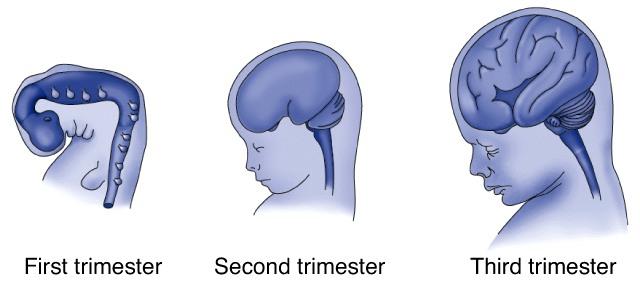
根据这一假设,人们会预期,拥有哥哥的同性恋者,由于其大脑“女性化”,必然会表现出典型的女性兴趣和行为。因为认为大脑的“去男性化”只会影响男孩的性偏好,而不会影响其他男性特有的品质,这种想法过于推测性。值得注意的是,一些研究表明,成年人的同性吸引与更“女性化”的大脑结构相关,但大脑的发育,无论从大小还是功能上来说,主要发生在出生之后。因此,正如作者自己所认为的,这些结构是出生后经历的结果,而非出生前因素的影响。Bogaert等人(2003;2005)、Kishida等人(2015)以及Semenyna等人(2017)的研究并未发现ESB与男性女性特质表达之间存在相关性。
第三,至少可以说,假设的宫内免疫病变,哥哥的数量,同性恋吸引力和出生时体重减轻之间的关系令人怀疑。
作为普遍免疫攻击的证据,ESB和免疫损伤假说的支持者引用数据表明,有哥哥的男性出生体重较低(Blanchard 2001)。在Blanchard的研究中,有哥哥的男孩出生体重平均降低约170克(占体重的5%)(Blanchard 2001)。根据该假说,有哥哥的同性恋男孩也应该出现类似的出生体重降低,而女孩则不应该出现这种情况。然而,事实并非如此——一项挪威研究考察了免疫反应与出生体重降低之间的假设联系,该研究分析了181万例新生儿,结果发现男孩和女孩的出生体重均有所降低(Magnus 1985)。此外,假设的“哥哥效应”在两性中均有观察到,且非常低——0,6%,相对于标准出生体重 3,500 克而言,差异为 20 ±4,5 克(Magnus 1985)。
根据这些数据,免疫因素在体重减轻中的作用似乎值得怀疑。值得注意的是,Magnus及其同事在研究中还考察了父系抗原对出生体重的影响。他们假设,如果体重减轻是由针对父系抗原的免疫抗体引起的,那么男孩和女孩都会出现这种情况。Magnus及其同事研究了母亲再婚并生育子女的男孩和女孩的出生体重。如果体重减轻是由免疫反应引起的,那么由不同父亲所生的孩子的出生体重应该恢复到正常基线值,因为另一位父亲携带新的抗原,而免疫抗体的积累需要一个渐进的免疫过程(多次妊娠)(Magnus 1985)。然而,另一位父亲所生的孩子的出生体重仍然偏低,作者得出结论,在他们的样本中,任何免疫过程与出生体重降低之间的关联均未得到证实(Magnus 1985)。
出生时体重减轻的原因可能是:(a)早产; (b)胎盘功能不全; (c)孕产妇自身免疫性疾病,例如系统性红斑狼疮(合并出生时的许多先天性疾病); (d)与睾丸疾病有关的多种病理。 对于拥有哥哥的男同性恋者,以上内容均未提及。
出生体重下降与免疫反应之间的关系尚未明确,仍处于高度推测阶段。根据James (2006) 的研究,观察到的出生体重下降可能与睾酮的影响有关 ( Manikkam 2004 )。此外,女性体内较高的睾酮水平与生育男孩的概率增加相关 ( James 1996 ; James 2004b )。Blanchard 在提出其假设时,引用了Gualtieri 和 Hicks (1985)的研究作为支持其假设的证据。该研究指出,新生儿的性别比例会随着子女数量的增加而向女性倾斜(换句话说,家庭子女越多,生男孩的概率就越低)。然而,这项研究存在解读错误(参见James 2004,第 52 页;James 1985)。相反,两项大型研究——一项分析了法国4万例新生儿(James 1975)和一项分析了美国150万例新生儿(Ben-Porath 1976)——发现,生男孩的概率随着哥哥数量的增加而增加,随着姐姐数量的增加而降低,这与ESB(性别决定论)相悖。Biggar等人(1999)利用这些数据对1,4万例新生儿进行了统计分析,发现生男孩的概率随着哥哥数量的增加而增加。
第四,温和地推测,家庭中的第一胎男孩不应该有同性恋偏好,因此,随着年龄的增长,其发展的风险也会增加。
并非所有同性恋男性都有哥哥;另一方面,有些哥哥或家中唯一的男孩是同性恋。该假说的支持者提出了一种反驳论点,认为这些男性的母亲在胎儿出生前曾发生过男性胎儿的自然流产,从而触发了免疫过程。经历自然流产的夫妇比例为1%;在这些案例中,约有一半的胎儿具有正常的核型,也就是说,可以认为一半的自然流产是由免疫反应引起的(Lee 2000)。然而,对因自然流产而死亡的胚胎性别比例的研究表明,其中超过一半是女性:男女比例分别为0,76(Eiben 1987)、0,71(Eiben 1990)和1,03(Be 1997)。 0,77(Smith 1998)、0,77(Evdokimova 2000)、0,83(Morikawa 2004)、0,35(Halder 2006)、0,09(Kano 2004)。
另一方面,根据免疫假说,子宫内每个男性胎儿的大脑在随后的妊娠中都会受到越来越强烈的攻击,也就是说,会经历越来越强的“女性化”过程。然而,事实并非如此。并非所有同性恋男性的弟弟都具有同性恋倾向。有趣的是,患有性别焦虑症的男性的弟弟——根据布兰查德的假说,他们的大脑应该经历“女性化”——发育正常(Green 2000)。
资料来源:迈克尔·奥克斯档案馆,盖蒂图片社
此外,根据该假设,人们会认为后出生的兄弟会因为母亲的免疫攻击增加而遭受许多身体问题,但事实恰恰相反:出生顺序较晚主要与更好的健康状况相关,而不是更差的健康状况相关(Juntunen 1997;Cardwell 2005;Sorenson 2005;Richiardi 2004)。
ESB的社会影响假说
产妇免疫假说的作者自己指出:
“……当然,除了母体免疫反应假说之外,还有其他可能的解释来解释哥哥效应。最流行的竞争假说是,与年长男性发生性行为会增加男孩产生同性恋倾向的可能性,而且男孩发生这种行为的机会与他哥哥的数量成正比……”(Ellis 2001)。
Wellings等人(1994,第204-206页)发现,就读男校的男性比未就读男校的男性更有可能报告有过同性恋经历,但两组人群在日后报告有同性恋经历的比例上并无差异。Blanchard(Ellis,2001)引用Wellings等人(1994)的论文作为社会假设不成立的证据。然而,他们对数据的解读方式却很奇特。Wellings在第206页提供了一张图表,从中可以看出,在7925名未就读男校的男性中,约有1,5%的人报告在过去5年内有过不止一次的同性恋经历;而在412名就读男校的男性中,这一比例为2%。显然,这些数据(两组人群规模不成比例)支持社会假设。我们不妨也考虑一下其他与社会理论相关的研究。
布兰查德本人指出,在男性恋童癖者中,约有25%是同性恋恋童癖者(Blanchard 2000b)。这一比例大约是性取向为年长男性的同性恋者比例的十倍。有研究表明,在男性中,同性恋和恋童癖可能存在共同的成因,即早期的性经历(或准性经历)(James 2004)。根据这一观点,早期的同性恋经历会抑制成年后对异性产生性兴趣。雷马费迪(Remafedi 1992)发现,青少年对自身性取向的不确定性会随着年龄的增长而降低:这些作者认为,性身份在青春期形成,并受到性经历的影响。
此外,同性恋男性童年时期遭受性虐待的概率比异性恋男性更高(保罗
2001; 芬克霍尔
1979, 1984);遭受男性性暴力与实施性犯罪之间存在显著关联(格拉瑟
2001);有相当高比例的成年男同性恋者表示,他们在 19 岁之前曾被鼓励或强迫发生性行为(坎宁安
1994);与对照组相比,童年时期遭受过性虐待的年轻男性的同性恋倾向率更高(约翰逊
1987; 芬克霍尔
1979, 1984;怀尔 泰特
1990; 坎宁安
1994; 格拉瑟
2001; 肉
2001; 加西亚
2002; 阿雷奥拉
2005; 贝奇曼
1991; 吉尼奇
1998; 劳曼
1993; 借贷王
1997; 保罗
2001; 朋友
1994)。由此可以得出结论,无论被吸引对象的年龄如何,同性恋兴趣都有一个共同的原因。布兰查德的研究表明,在同性恋和双性恋恋童癖者中也观察到性行为障碍(SBE),也就是说,这些人有哥哥(博加特
1997).
Lee等人(2002)试图确定以下几种危险因素中的哪些与儿童恋童癖,暴露狂,性虐待有关,这些因素是儿童的情感虐待,行为问题和儿童的性虐待。 儿童性虐待是恋童癖的特定危险因素。 其他相关因素(情绪虐待和行为问题)与恋童癖关系不那么密切。 此外,鉴于家庭中几个同性恋兄弟姐妹与乱伦之间存在明显的相关性,应该考虑将乱伦作为生物学解释的替代方法。 当一个兄弟(通常是较大的兄弟)表现出同性恋倾向时,其他兄弟就有被诱惑或强奸的危险,这可以解决他们的同性恋活动(卡梅隆1995) 根据英国的统计资料,在家庭中有38%的性暴力案件发生在兄弟一方(考森xnumx) 据研究员 巴特利特(2018),在大众心理学中关于成年人的个性是否取决于其出生顺序的讨论是一个漫长的故事,大量的科学文献涵盖了成千上万的著作(达米安(Damian Xnumxa); Paulhus 2008; 鲑鱼) 在过去的几十年中,对这一问题的研究建立在这样的观念上,即兄弟姐妹之间争夺父母注意力的资源导致了这样一个事实,即家庭中孩子的出生顺序会影响孩子的个人素质。 通常,由于孩子们适应了家庭中各种利基的使用,因此年龄较大的孩子更具统治力,并承担了部分父母的权力,而后期的孩子则更加外向,善于交际(Sulloway 1996) 应当指出的是,由于家庭规模和社会经济状况的变化以及小样本的影响显着影响统计计算的结果,因此可能或多或少地充分研究ESB比较的研究应至少包含30千个同胞比较,而从500系列开始,如何比较比较相对一致的家庭样本的研究被认为是足够的(Paulhus 2008) 尽管使用小样本进行的研究表明ESB的数据存在冲突,但在大型研究中(例如 Rohrer xnumx,n = 20 000; 达米安xnumxb,n = 377 000),出生顺序对个人素质的影响(达米安(Damian Xnumxa)) 这些经验数据表明,如果孩子长大成人,随后的每个孩子的智力指标将下降大约标准偏差的十分之一(克里斯滕森2007),这清楚地表明了造成这种情况的原因是父母投资减少,而不是子宫内的生物过程。 大规模研究还揭示了出生顺序对诸如学业成绩,财务成功和自杀风险等素质的影响(比约恩加德2013; 黑色xnumx).
因此,由兄弟的出生顺序的假设所推动的同性吸引的生物学基础没有任何经验支持,尽管有许多经验证据对此表示反对。
LGBT*+运动对布兰查德态度的双重性
假设ESB和母体免疫确实存在,并且确实会导致行为改变。在这种情况下,布兰查德的假设混淆了同性恋和变性(以及同性恋恋童癖)——这在现代“LGBT*+”运动中是亵渎神明的。例如,根据美国心理学会的说法,性吸引和性别认同是完全无关的现象(APA 2011/2014)。根据布兰查德的假设,变性是一种病理,其原因要么是(1)同性恋吸引的极端表现,在这种情况下,大脑的“女性化”非常明显,以至于影响了性别认同;要么是(2)一种心理偏差,在这种偏差中,性吸引并非指向异性,而是指向自身异性的形象(布兰查德将后一种情况称为“自体性恋” ¹⁴)(Blanchard 1989;Bailey 2003)。布兰查德显然认为变性是一种病理现象。此外,布兰查德在一次采访中指出:
“……我想说,如果从头开始,忽略同性恋被排除在《精神疾病诊断与统计手册》(DSM)之外的整个历史,正常的性行为就是与生殖有关的15 ……”(Cameron 2013)。
这一大胆的立场引起了 LGBT*+ 运动代表的不满,尤其是那些代表“T”的人士(Wyndzen 2003;Troadsmap;Dreger 2008;Serano 2010)。
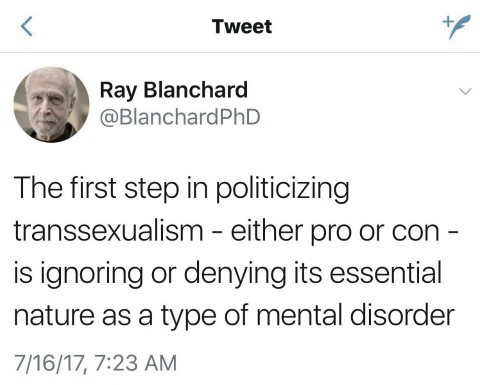
LGBT*+ 运动的活动人士这样描述布兰查德:
“……布兰查德经常被反LGBT*团体引用(……)这有什么奇怪的呢?布兰查德是天主教徒,他持有非常传统的观念,认为任何不涉及阴茎和阴道的性接触都是不正常的(……)如果布兰查德博士只是个没有地位或权威的疯子,他很容易被揭穿。但事实并非如此——恰恰相反,他是负责性欲倒错和性功能障碍的DSM委员会成员(……)他公开反对LGBT*……”(Tannehill 2014)。
另一方面,布兰查德假设的证实对LGBT+运动的一个基本信条——基于对象性别的性吸引力规范性概念——提出了质疑。毕竟,在这种情况下,同性恋倾向是有原因的——一种病理性的免疫反应。否则,LGBT+活动人士就必须扭曲他们对医学和生物学的理解,才能将一种会导致流产、体重减轻、生育能力下降、需要激素药物和手术治疗的心理智力状态改变,以及恋童癖和暴力倾向的免疫反应视为正常现象。
此外,通过类比在Rh冲突妊娠期间使用抗恒河猴免疫球蛋白,也有望预防男孩出现同性恋倾向。有多少比例的未来父母,甚至是那些忠于 LGBT*+ 运动的父母,会有意识地拒绝降低男孩同性恋吸引力风险的机会?事实上,今天每个妇女都被仔细地解释了堕胎的允许性和普遍性。女性影响胎儿生命的权利是否也会延伸到影响胎儿未来性行为的权利,还是会选择性地禁止和迫害那些提供这种机会的专业人士?
目前,这些问题都是一种可能性。
口译问题
实证研究的结果存在一些重大的内部局限性,与前面几节中讨论的类似。 忽略这些局限性是对公共空间研究产生误解的主要原因之一。 正如大脑结构示例所示,很容易假设,如果特定的生物学特征与某种行为或心理特征相关联,那么这种生物学特征就是该特征的原因。 该推理基于错误。
我们使用以下假设示例简要说明了该研究领域内在的局限性。 假设我们必须对瑜伽教练和健美运动员的大脑进行比较研究。 如果搜索时间足够长,那么最终这些群体之间的形态结构或脑功能的任何区域都会有统计学上的显着差异。 但这并不意味着这种差异决定了瑜伽教练和健美运动员的生活轨迹特征。 脑部特征可能是行为和兴趣的独特模式的结果,而不是原因。 关于神经可塑性的研究表明,尽管存在着关键的发育时期,在此期间大脑的变化更快,更强壮(例如,在幼儿的语言发展过程中),但大脑在整个生命中仍在不断变化,对行为模式做出了响应(例如,玩杂耍或玩耍)乐器),生活经历,心理治疗,药物,心理创伤和人际关系。 有关神经可塑性研究的有用且可访问的概述,请参见Doidge 2007。
确定某物是否具有生物学原因是一个极其复杂的过程,而确定特定的遗传联系则更加困难。 声明式地提供了无可否认的“证据”,即同性恋“以这种方式出生”的研究充其量是不一致的,而且其结果在本质上具有很大的相关性。
在某些情况下,例如,在双胞胎研究中,证据表明,早期的环境因素对同性恋倾向的发生具有主要影响。 这两个因素之间的相关性并不意味着它们之间存在因果关系。 篮球运动员个子很高-打篮球当然与高增长息息相关。 但是,没有“篮球基因”。 显然,一些有趣的关联被认为是出于政治和宣传目的的因果关系。
最终,假设某些人可能由于遗传,产前,激素的影响或其他身体或大脑特征而倾向于同性恋倾向。 这是否意味着同性恋是一种先天性现象? 完全不了解媒体和流行文化是如何表示的。 害羞而富有艺术气息的年轻男孩,其父亲不注意养育,不是正确的男性行为的例子,可能有同性恋倾向。 这不是由于同性恋的“基因”,而是由于性认同形成的心理过程受到干扰。 这样的男孩在情感上需要自我肯定和男性关注。 在与古典性格不符的女孩中也观察到类似的情况。 这些孩子的问题和情感需求通常是由性和性世界观的当前趋势所引起的。
这些例子说明了这类研究的广泛解释所产生的常见问题之一,即神经生物学因素决定特定行为模型的假设。
如果自然赋予某人同性的吸引力,那么为什么它不赋予其实现它所必需的物理特性呢? 例如,直肠的致密且多层的上皮膜能够承受长时间的摩擦,其腺体释放出足够的润滑性,更薄的阴茎可渗透到直肠中,等等。 现在,如果这些特征存在于同性恋者中,那么人们可以说是先天性。 如果具有一组正常的染色体和一个正常的生殖系统,而它们却被吸引到无法将其用于预定目的的物体上,那么关于这种现象的生物学条件的讨论似乎就很有推测性。
LGBT*+运动部分代表的意见
2014中的美国心理学会发布了有关心理疾病和性学的指南。 这是它的直接引号:
“……目前尚未发现任何与同性恋相关的基因……”(Rosario,APA 2014,第 579 页)
“……不可否认的现实是,人类的性行为是由多种因素共同决定的:生物因素、社会因素和选择因素……”(Kleinplatz,APA 2014,第 256 页)。
APA领导层几章的作者是APA专家委员会的成员Lisa Diamond教授,她并不掩饰自己的同性恋偏好。 戴蒙德(Diamond)反对同性恋的遗传条件理论。 她确信“同性恋是这样出生的,不能改变”的论断是错误的。 在2013年中,戴蒙德在康奈尔大学的一次演讲中说:
“……我认为酷儿群体需要停止说‘我们生来如此,我们无法改变’,并停止在我们的斗争中使用这个口号……我认为这种争论不再必要,甚至有害,因为如今有大量令人信服的科学证据,‘另一方’和我们都知道……”(Diamond 2013)。
美国的卡米拉·帕格里亚(Camilla Paglia)曾写过许多关于艺术和哲学的书,但并没有掩饰自己的同性偏好,他直言:
“……同性恋不是一种常态。恰恰相反,它挑战了常态……那些装腔作势、只会蹭吃蹭喝的骗子——酷儿理论家——试图用后结构主义的论调来宣称,由于一切都是随机的、相对的,所以根本不存在什么常态。这正是那些沉迷于文字游戏的人,对周围的世界充耳不闻、视而不见时,最终陷入的愚蠢死胡同。无论科学家喜欢与否,自然界都存在,而在自然界中,繁衍是唯一且不可抗拒的法则。它就是常态。两性的身体都是为了繁衍后代而设计的。阴茎与阴道相契合,任何花哨的文字游戏都无法改变这一生物学事实……没有人天生就是同性恋。这种想法本身就荒谬至极……同性恋是一种适应,而非与生俱来的属性……”(帕利亚,1994,第70-76页)。
另一位著名的美国活动家辛西娅·尼克松 (Cynthia Nixon) 因公开表达她认为自己的同性恋倾向是个人选择而非生物学因素而遭到 LGBT+ 运动的攻击 ( Witchell 2012 )。
美国 LGBT*+ 活动家兼记者布兰登·安布罗西诺 (Brandon Ambrosino) 也表示,他并非天生同性恋,而是有意识地选择了同性恋的生活方式 ( Ambrosino 2014 ),这引起了 LGBT*+ 运动中一些同事的强烈不满 ( Arana 2014 )。
资料来源:Frazer Harrison / WireImage
LGBT*+ 运动的女权主义者和活动家 Carla Mantilla 在她的文章中写道:
“……我一直认为LGBT+运动利用“天生如此”这种论点的策略存在着巨大的缺陷……当然,这是一种选择——还能是什么呢?……有一段时间,我参加了一个互助小组,成员都是在传统婚姻中决定成为女同性恋的女性。有一次,我问她们:‘你们是怎么知道自己是女同性恋的?’”一位女士回答说,她从未对男性有过情感上的亲近感,而且她总是更容易被女性理解。另一位女士立刻表示赞同,说她也只有对女性才能敞开心扉。其他人点头表示同意。这种情况有什么问题呢?几乎所有女性都有这种感觉!我认识的每一个异性恋女性都觉得和朋友倾诉更自在,和她们更亲近,更容易被理解,也更愿意向女性敞开心扉。如果这就是成为女同性恋的条件,那么所有女性都是女同性恋了。“这真是老生常谈……女性抱怨她们的伴侣不和她们交流,不理解她们的感受,对她们想说的话也不感兴趣。”女性杂志上最常见的文章是关于如何让你的丈夫敞开心扉与你交谈……与某人产生情感上的亲近感没有生物学基础,它是由一个人的情感和心理特征决定的……随着时间的推移,我逐渐明白,这个互助小组中的女性只是对离开丈夫感到巨大的内疚……因此,她们无法控制自己是女同性恋,这其中有生物学原因的想法,使她们免除了内疚感和对自己行为的责任……”(Mantilla 2004)。
加州LGBT活动家盖尔·马德温甚至创建了一个网站,论证同性恋行为并非与生俱来,而是一种有意识的选择(Queer by Choice)。前LGBT活动家大卫·本科夫也认为,同性恋生活方式绝非由生物因素决定(Benkof 2014)。
笔记
1:我们就是这样出生的
2通常互不相关
3根据同性恋倾向的“严格”标准:2和更多所谓的同性恋倾向 金西规模。
4英文 GWAS,全基因组关联研究
科学界中的5采纳了在会议上提交简历的做法-简短的文章,通常为150-250字大小-随后在期刊上发表全文
6英语:可能天生就有倾向
7在这方面,可能限制人均分配结果
8病毒化-一种医学术语,指的是女性的性特征发展为男性的侵犯行为
9英语:“下丘脑前部间质核(INAH)”
10英语:“预先抑制人类惊吓反应(PPI)”
11英语:“兄弟出生顺序效应(FBO)”
12参见Twin Research部分
13此外,在PK情况下的抗原和移植排斥反应是个体的(在PK情况下是父系的),但是是男性的特征。
来自希腊语的14 汽车-“自我”,基尼-“女人”和菲利亚-“爱”; “作为一个女人爱自己”
15我想说的是,如果可以从头开始,请忽略所有从DSM移除同性恋的历史,那么正常的性行为与生殖有关
更多信息
其他信息和详细信息可以在以下来源中找到:
1. 怀特海NE,怀特海BK. 我的基因让我做到了! 同性恋和科学证据。 怀特海协会。 版本5th 2018。
2. Mayer LS,McHugh PR。 性与性别:生物学,心理学和社会科学的发现。 新亚特兰蒂斯 数50,秋季2016。
3. Sprigg P.等。 搞清楚:研究对同性恋的看法。 华盛顿:家庭研究委员会(2004)。
3. Harrub B,Thompson B,Miller D. “这是上帝创造我的方式”对同性恋和“同性恋基因”的科学检验。 理性与启示。 2004 8月; 24(8):73。
5. 索尔巴尔. “天生的同性恋”骗局。 瑞安·索尔巴(Ryan Sorba Inc.) 2007年第一版。
6. 怀特海NE. 抗男孩抗体? 复查产妇免疫假说. 生物社会科学杂志2007.
7. 骑士. 生还是育? 科学不支持同性恋是遗传的说法... 文化家庭研究所。 美国关注女性。 2004年。
8. 范登·阿德维格. 同性恋和生物因素:真实证据-无; 误导性解释:大量。 转载自NARTH公告,2005冬季。
9. 哈伯德(Hubbard R),瓦尔德(Wald)E. 揭开基因神话:科学家,内科医生,雇主,保险公司,教育工作者和执法人员如何产生和操纵遗传信息。 波士顿灯塔报; 1999。
书目来源
- Vasilchenko G.S. 性病理学:手册/编辑。 G.S. 瓦西连科。 -M.,1990。
- Yarygin V.N. (2003)//生物学。 在2书中 埃德 V.N. Yarygin / Yarygin V.N.,Vasilieva V.I.,Volkov I.N.,Sinelshchikova V.V. 5版,修订版 并添加。 -M .:高中,2003。 图书1-432s。图书2-334s。
- ASHG 2015。 表观遗传算法可以准确预测ASHG 2015年会上报告的男性性取向调查结果。 即时发布日期为10月8,2015 201510 http://www.ashg.org/press/XNUMX-sexual-orientation.html
- Albrecht ED,Pepe GJ。 灵长类动物妊娠期间雌激素对胎盘血管生成和胎儿卵巢发育的调节,“国际发育生物学杂志54,第 2 – 3(2010):397 – 408,http://dx.doi.org/10.1387/ijdb.082758ea
- 艾伦(Allen S.) 每日野兽。 20.11.2014。 https://www.thedailybeast.com/the-problematic-hunt-for-a-gay-gene(已通过01.12.2017验证)
- Ambrosino B.我不是天生的。 我选择当同性恋。 新共和国。 28年2014月116378日。https://newrepublic.com/article/XNUMX/macklemores-same-love-sends-wrong-message-about-being-gay
- 预约定价安排 美国心理学会。 回答您的问题。 关于变性人,性别表达和性别认同。 由公共关系和协会成员办公室编写。 印刷2011; 更新了04 / 2014.https://www.apa.org/topics/lgbt/transgender-russian.pdf
- Arana G. Ezra Klein的“同性恋新人”。 13年2014月XNUMX日。《美国前景》。
- 阿雷拉(SG),尼兰(Neilands),TB,波拉克(Pallack),LM,保罗(JP)和卡塔尼亚(JA)卡塔尼亚(2005)城市男性健康研究。 儿童虐待和忽视29,285-290。
- Bailey J. M等人,“人类男性同性恋的孕产妇压力理论测试”,性行为档案20,第1期。 3(1991):277 – 293,http://dx.doi.org/10.1007/BF01541847
- Bailey,J.Michael(2003)。 将成为女王的人:性别弯曲和变性欲的科学。 约瑟夫·亨利出版社
- Bailey JM等。 遗传和环境对性取向的影响及其与澳大利亚双胞胎样本的相关性。 J Pers Soc Psychol。 2000 3月; 78(3):524-36。
- 贝恩斯JS,Wamsteeker Cusulin JI,井上W.下丘脑中与压力相关的突触可塑性。 Nat Rev Neurosci。 2015 7月; 16(7):377-88。 doi:http://dx.doi.org/10.1038/nrn3881
- 男爵M.遗传学与人类性取向。 生物精神病学。 6月1 – 15,1993,第33卷,第11-12期,第759 – 761页。
- 新罕布什尔州巴特利特(Bartlett NT)和赫德(Hurd PL)的关系。 拱门性行为。 2018一月; 47(1):21-25。 doi:10.1007 / s10508-017-1109-z。
- Be,G.,Velasquez,P.&Youlton,R.(1997)自发性流产:609例病例的细胞遗传学研究。 Revista Medica de Chile 125,317-322。
- Bearman PS,BrücknerH.《相反的双胞胎和青少年同性引诱》。 美国社会学杂志2002 107:5,1179-1205
- Bearman,PS和Brückner,H。(2002)。 对性双胞胎和青少年同性吸引力。 《美国社会学杂志》 107,1179-1205。 doi:10.1086 / 341906。
- Beer,AE和Billingham,RE(1975)母乳-围产期关系中牛奶的免疫学益处和危害。 内科医学杂志83,865-871。
- Beitchman,JH,Zucker,KJ,Hood,JE,Da Costa,GA&Akman,S.(1991)对儿童性虐待的短期影响的回顾。 儿童虐待和忽视15,537-556。
- 同性恋历史学家说,没人能“那样出生”。 每日来电者。 19.03.2014。 dailycaller.com/2014/03/19/nobody-born-that-way-gayhistorians-say/
- Ben-Porath,Y。等人。 (1976)性别偏好真的重要吗? QJ Econ。 90,285 – 307。
- Berenbaum SA。 激素如何影响行为和神经发育:“性腺激素和行为性别差异”特刊简介。 发展神经心理学14(1998):175 – 196,http://dx.doi.org/10.1080/87565649809540708
- Biggar,RJ等。 (1999)性别比,家庭人数和出生顺序。 是的 J.流行病。 150,957 – 962。
- 比林斯,贝克威斯。 技术评论。 1993 7月,第60页。
- Bjørngaard,JH,Bjerkeset,O.,Vatten,L.,Janszky,I.,Gunnell,D.,&Romundstad,P.(2013)。婴儿出生时的母亲年龄,出生顺序和年轻时的自杀:A同级比较。 美国流行病学杂志,177,638-644。 https://doi.org/10.1093/aje/kwt014。
- Black,SE,Devereux,PJ和Salvanes,KG(2005)越多越好? 家庭规模和出生顺序对儿童教育的影响。 经济学季刊,120,669-700。 https://doi.org/10.2307/25 098749。
- Blanchard R(1989年18月)。 “非同性恋性别焦虑症的分类和标签”。 性行为档案。 4(315):34-10.1007。 doi:01541951 / BFXNUMX
- Blanchard R,Bogaert AF。 (1996)男性同性恋和年龄较大的兄弟人数。 美国精神病学杂志153,27 – 31。
- Blanchard R,Bogaert AF。 男性同性恋和年龄较大的兄弟人数。 美国精神病学杂志; Jan 1996a; 153,1; 研究图书馆,第16页。 Xnumx
- Blanchard R.,等。 (2000)恋童癖者的兄弟出生顺序和性取向。 拱门的性行为29,463 – 478。
- Blanchard,R.和Bogaert,AF(1996b)在Kinsey Interview数据中对同性恋和异性恋男人的生物人口统计学比较。 性行为档案25,551-579。
- Blanchard,R.&Bogaert,AF(1998)针对儿童,青春期和成人的同性恋与异性恋罪犯的出生顺序。 性行为档案27,595-603。
- Blanchard,R.&Ellis,L.(2001)出生体重,性取向和先前的兄弟姐妹的性别。 J.biosoc。 科学33,451-467。
- Blanchard,R.(2014)。 在性取向和兄弟出生顺序的研究中发现并纠正家庭规模差异,性行为档案,43,845 – 852。 https://doi.org/10.1007/s10508-013-0245- 3。
- Blanchard,R.兄弟出生顺序,家庭规模和男性同性恋:跨25年研究的荟萃分析。 拱门性行为(2018)47:1。 https://doi.org/10.1007/s10508-017-1007-4
- Blanchard,R.,&Bogaert,AF(2004)。 由于异性取向而异性取向的同性恋男子所占比例:基于两个国家概率样本的估计。美国人类生物学杂志,第16卷,第151-157页。
- Blanchard,R.,&VanderLaan,DP(2015)。 对Kishida和Rahman(2015)的评论,包括有关男性兄弟出生顺序和性取向的相关研究的荟萃分析。 SexualBehavior,44,1503-1509年的档案。 doi:10.1007 / s10508-015-0555-8
- Blanchard,R.,Barbaree,HE,Bogaert,AF,Dickey,R.,Klassen,P.,Kuban,ME&Zucker,KJ(2000)恋童癖者的兄弟出生顺序和性取向。 性行为档案29,463-478。
- N块,“遗传力如何误导种族”,认知56,不。 2(1995):103 – 104,http://dx.doi.org/10.1016/0010-0277(95)00678-R
- 自动对焦Bogaert,AF(2003)。 在预测男性的性取向时,哥哥之间的相互作用和性别分型。 性行为档案,32,129 – 134。
- Bogaert,AF(2004)。男性同性恋的患病率:兄弟出生顺序和家庭规模变化的影响。 理论生物学杂志,230,33 – 37。
- 自动对焦Bogaert,AF(2005)。 同性恋者的性别角色/身份和同胞性别比。 《性与婚姻疗法杂志》,31,217 – 227。 https://土井。 org / 10.1080 / 00926230590513438。
- Bogaert,AF(2006)生物与非生物哥哥和男性性取向。 103,10771 – 10774国家科学院学报。
- Bogaert,AF,Bezeau,S.,Kuban,M.&Blanchard,R.(1997)恋童癖,性取向和出生顺序。 异常心理学杂志106,331-335。
- Bogaert,AF和Skorska,M。(2011)。 性取向,兄弟出生顺序和孕产妇免疫假设:Areview。 《神经内分泌学前沿》,第32卷,第247-254页。
- Bogaert,AF(2005)。男女同级性别比和性取向:两个国家概率样本中的新测试,性行为档案,34,111 – 116。 doi:10.1007 / s10508-005-1005-9。
- Bogaert,AF(2010)。男女的身体发育和性取向:NATSAL-2000分析。 性行为档案,39,110 – 116.doi:10.1007 / s10508-008-9398-x。
- Briggs WM。 关于新发现的“同性恋基因”,或模型技巧的重要性。 十月13,2015。 wmbriggs.com/post/17053/
- Byne W,Tobet S,Mattiace LA等。 人下丘脑前部的间质核:性别,性取向和艾滋病毒状况变化的调查。 霍尔行为。 2001 Sep; 40(2):86-92。 http://dx.doi.org/10.1006/hbeh.2001.1680
- 拜恩·W。受到质疑的生物证据。 科学人杂志,五月1994,第50-55。
- JC考德威尔(1997)。 达到稳定的全球人口:我们学到了什么,我们必须做些什么。 健康过渡审核,7,37 – 42。
- Cameron P等。 乱伦会导致同性恋吗? 心理报告,1995,76,611-621。
- 卡梅隆·L(Cameron L.)与人合着《性爱手册》的精神病医生如何谈论性? 主板。 4月11 2013。 https://motherboard.vice.com/en_us/article/ypp93m/heres-how-the-guy-who-wrote-the-manual-on-sex-talks-about-sex
- Cantor,JM,Blanchard,R.,Paterson,AD和Bogaert,AF(2002年)有多少男同性恋者的性取向与兄弟姐妹的生育顺序有关? 性行为档案31,63–71。
- Cardwell,CR,Carson,DJ&Patterson,CC(2005)父母的分娩年龄,出生顺序,出生体重和胎龄与儿童1型糖尿病的风险有关:一项英国区域回顾性队列研究。 糖尿病医学22-200。
- Cawson P等。 英国的儿童虐待:虐待和忽视的普遍性研究。 NSPCC研究发现,十一月2000。
- Chaix,R.,Cao,C.,&Donnelly,P.(2008年)。 人类的伴侣选择是否依赖MHC? 《公共科学图书馆遗传学》,4,e1000184。
- Cohen-Kettenis PT,46中的性别变化,患有5α-还原酶-2缺乏症和17β-羟基类固醇脱氢酶-3缺乏症的XY人。 性行为档案34,否。 4(2005):399 – 410,http://dx.doi.org/10.1007/s10508-005-4339-4
- Collins FS上帝的语言。 纽约,纽约Simon&Schuster,Inc. 2006年。
- Cote,K.,Earls,CM&Lalumiere,ML(2002)出生顺序,出生间隔和性犯罪者之间的性偏爱。 性虐待:《研究与治疗杂志》 14,67-81。
- 坎宁安(RN)等。 (1994)身体和性虐待与青春期和成年期的HIV风险行为的关联:对公共健康的影响。 儿童虐待内格。 18,233 – 245。
- RI,Damian和BW的Roberts,(2015a),有关出生顺序和性格的辩论。 美国国家科学院院刊,112,14119-14120。 https://doi.org/10.1073/pnas.1519064112。
- Damian,RI,&Roberts,BW(2015b)。美国高中学生代表性样本中的出生顺序与人格和智力的关联。Journal of Researchin Personality,58,96-105.https:// doi.org/10.1016/j.jrp .2015.05.005。
- Dankers,MK,Roelen,D.,Korfage,N.,de Lange,P.,Witvliet,M.,Sandkuiil,I.,Doxiadis,II&Claas,FH(2003)孕妇父本HLA I类抗原的差异免疫原性女人。 人类免疫学64,600-606。
- 研究表明,天生的杀手:人类容易被谋杀。 卫报。 28.09.2016。 https://www.theguardian.com/science/2016/sep/28/natural-born-killers-humans-predisposed-to-study-suggests(已通过01.12.2017验证)
- Dawkins R.恶魔的牧师:对希望,谎言,科学和爱的反思。 2004年第一本水手书
- 钻石丽莎。 女性和男性的性取向有何不同? 17.10.2013年2月43日。 康奈尔大学。 https://www.youtube.com/watch?v=m13rTHDOuUBw&feature=youtu.be&t=01.12.2017mXNUMXs(已检索XNUMX)
- 道奇·诺曼(Doidge Norman),“自我改变的大脑:来自大脑科学前沿的个人胜利故事”(纽约:企鹅出版社,2007)
- DörnerGünter等人,“双性恋和同性恋男性的产前生活中的紧张事件”,《实验与临床内分泌学》,81,第1期。 1(1983):83 – 87,http://dx.doi.org/10.1055/s-0029-1210210
- Drabant EM等人,“基于网络的大型队列中性取向的全基因组关联研究”,23andMe,Inc.。 (程序号:2100W)在62年7月2012日于美国加利福尼亚州旧金山举行的美国人类遗传学会第2012届年会上发表。 http://abstracts.ashg.org/cgi-bin/12/ashg120123120s?author=drabant&sort=ptimes&sbutton=Detail&absno=320078&sid=XNUMX
- 德雷格公元。 围绕“将要成为女王的人”的争论:互联网时代的科学,认同和性政治案例研究。 性行为档案。 2008; 37(3):366-421。 doi:10.1007 / s10508-007-9301-1。
- Ebstein Richard P.等人,“人类社会行为的遗传学”,神经元65,第1期。 6(2010):831 – 844,http://dx.doi.org/10.1016/j.neuron.2010.02.020
- Eiben,B.,Bahr-Porsch,S.,Borgman,S.,Gatz,G.,Gellert,G.&Goebel,R.(1990)用绒毛膜绒毛和绒毛的直接制备方法对750例自然流产进行细胞遗传学分析。它对研究妊娠流产的遗传原因的意义。 美国人类遗传学杂志47,656-663。
- Eiben,B.,Borgman,S.,Schubbe,I.和Hansman,I.(1987)来自140个自然流产者绒毛膜的细胞遗传学研究方向。 人类遗传学77,137-141。
- Ellis L,Blanchard R(2001)男女同性恋和异性恋的出生顺序,兄弟姐妹的性别比率和产妇流产。 个人的 个人。 区分30,543 – 552。
- Ellis Lee和Cole-Harding Shirley,“产前压力以及产前饮酒和尼古丁暴露对人类性取向的影响”,《生理与行为》 74,第1期。 2001(213):226-10.1016,http://dx.doi.org/0031/S9384-01(00564)9-XNUMX
- Ellis Lee等人,“人类后代的性取向可能会因怀孕期间的严重母体压力而改变”,《性研究杂志》 25,第1期。 2(1988):152 – 157,http://dx.doi.org/10.1080/00224498809551449
- 恩尼斯·D·人权运动在有争议的《跨报道》之后将目光投向了约翰·霍普金斯。 2016。 NBC新闻。
- Evdokimova,VN,Nikitina,TV,Lebedev,IN,Sulchanova,NN&Nazarenko,SA(2000)男性早期胚胎死亡率的性别比。 本体论31,251-257。
- Fausto-Sterling A.,Balaban E.遗传学和男性性取向。 科学。 1993; 261:1257。 http://dx.doi.org/10.1126/science.8362239
- Finkelhor,D.(1979)性被害儿童。 纽约自由出版社。
- Finkelhor,D.(1984)儿童性虐待:新理论与研究。 纽约自由出版社。
- Finn R.性升温的生物测定作为研究领域。 科学家10 [1]:1月。 08,1996。
- Flannery,KA&Liderman,J.(1994)对免疫反应理论的检验,以探讨患有免疫疾病的女性后代中神经发育障碍的起源。 皮质30,635-645
- 弗朗西斯·AM(2008)。 家庭和性取向:男女同性恋之间的家庭人口统计相关。《性研究》,45,371 – 377。 doi:10.1080 / 00224490802398357。
- Freund,K.&Kuban,M.(1994)恋童癖的滥用者理论的基础:对早期研究的进一步阐述。 性行为档案23,553-563。
- Frisch,M.和Hviid,A.(2006)。童年家庭对异性婚姻和同性恋婚姻的影响:一项对35,533万丹麦人的全国队列研究。性行为档案,547-10.1007 .doi:10508006 / s9062-2-XNUMX。
- Garcia,J.,Adams,J.,Friedman,L.和East,P.(2002)圣地亚哥大学生过去的虐待,自杀观念和性取向之间的联系。 美国大学健康杂志51,9-14。
- Gasparoni,A.,Avanzini,A.,Ravagni Probizer,F.,Chirico,G.,Rondini,G.&Severi,F.(1992)在母体和脐带血清和母乳中比较了IgG亚类。 儿童疾病档案67(1),特别号41–43。
- Gavrilets S,弗里贝格U,赖斯WR。 了解同性恋:从模式转向机制。 拱门性行为。 2017。 DOI 10.1007 / s10508-017-1092-4
- Gelman M. Gay基因小报炒作更新。 统计建模,因果推论和社会科学。 十月10,2015。 https://andrewgelman.com/2015/10/10/gay-gene-tabloid-hype-update/
- Ginalksi,K.,Rychlewski,L.,Baker,D.和Grishin,NV(2004)人Y染色体男性特定区域的蛋白质结构预测。 美国国家科学院院刊101,2305-2310
- Glasser,M。等人。 (2001)儿童性虐待的周期:受害与成为犯罪者之间的联系。 Br。 J.精神病学。 179,482 – 494。
- Gomes AR,Souteiro P,SIlva CG等。 在抗逆转录病毒疗法下,艾滋病毒感染男性的睾丸激素缺乏症患病率。 BMC感染病。 2016; 16:628。 2016在线发布11月3。 http://dx.doi.org/10.1186/s12879-016-1892-5
- Greally J.对本周的表观遗传学研究有过多的解释(2)。 EpgntxEinstein。 纽约市布朗克斯市艾伯特·爱因斯坦医学院的表观基因组学中心博客。
- Green,R.(2000)变性人中兄弟姐妹的出生顺序和比率。 心理医学30,789 – 795。
- Gualteri,T.&Hicks,RE(1985)选择性男性折磨的免疫反应理论。 行为。 脑科学8,427-477。
- Guleria I,Sayegh MH。 胎儿的母体接受:真正的人类宽容。 J Immunol 3月15,2007,178(6)3345-3351; DOI:https://doi.org/10.4049/jimmunol.178.6.3345
- Haler,A.&Fauzdar,A.(2006)反复性流产早期流产中性别比例偏高和非整倍性较低。 印度医学研究杂志124,9-10。
- Hall Lynn S.和Love Craig T.,“女性单卵双胞胎的手指长度比与性取向不一致”,性行为档案32,第1期。 1(2003):23 – 28,http://dx.doi.org/10.1023/A:1021837211630
- Hamer D,CopelandP。《欲望的科学:寻找同性恋基因和行为生物学》。 西蒙和舒斯特1994
- Hamer D.上帝基因:信仰如何扎根于我们的基因。 双日xnumx
- Hamer DH等人,“ X染色体上的DNA标记与男性性取向之间的联系”,科学261,第1期。 5119(1993):321 – 327,http://dx.doi.org/10.1126/science.8332896
- Han,TH,Chey,MJ&Han,KS(2006)韩国中性粒细胞减少症新生儿的粒细胞抗体。 韩国医学会杂志21,627-632。
- 哈里森·霍尔斯特德(Harrison Halstead),“对论文的技术评论,'与人类惊吓反应的预脉冲抑制相关的性取向相关差异'”,华盛顿大学网站,15,12月2003,http://www.atmos.washington.edu/ 〜哈里森/报告/ rahman.pdf。
- 哈顿GI。 下丘脑功能相关的可塑性。 神经科学年鉴。 1997; 20:375-97。 http://dx.doi.org/10.1146/annurev.neuro.20.1.375
- Hoekzema E等。 怀孕会导致人类大脑结构发生持久变化。 《自然神经科学》第20卷,第287 – 296(2017)页。
- Heston,LL,Shields,J.,“双胞胎中的同性恋家庭研究和注册研究”,Arch Gen Psychiat。 1968; 18:149
- Hildebrand,H.,Finkel,Y.,Grahnquist,L.,Lindholm,J.,Ekbom,A.&Aksling,J.(2003)1990-2001年斯德哥尔摩北部小儿炎症性肠病的变化模式,肠道52 1432- 1434。
- Hines M.产前内分泌对性取向和童年性行为的影响。 前神经内分泌。 2011 Apr; 32(2):170 – 182。 doi:10.1016 / j.yfrne.2011.02.006
- Hines Melissa等人,“女孩和男孩的产前压力和性别角色行为:纵向人口研究”,激素和行为42,第1期。 2(2002):126 – 134,http://dx.doi.org/10.1006/hbeh.2002.1814
- HönekoppJ等人,“第二至第四位数字的长度比(2D:4D)和成人性激素水平:新数据和荟萃分析”,《神经内分泌学》(32),第1期。 4(2007):313 – 321,http://dx.doi.org/10.1016/j.psyneuen.2007.01.007
- 霍根,约翰。 (1995)“再探同性恋基因”。《科学美国人》第一卷。 273,不。 5,1995,页 26 – 26。 JSTOR,JSTOR,www.jstor.org / stable / 24982058
- Hubbard R.,Wald E.探索基因神话:科学家,内科医生,雇主,保险公司,教育工作者和执法人员如何产生和操纵遗传信息。 1999。 波士顿出版社。 ISBN:978-080700431-9,在95-96页上。
- Huffpost 2017。 迪恩·哈默(Dean Hamer)和乔·威尔逊(Joe Wilson)。 https://www.huffingtonpost.com/author/qwavesjoe-855(已验证01.12.2017)
- Hughes IA等人,“雄激素不敏感综合症”,《柳叶刀》 380,第1期。 9851(2012):1419 – 1428,http://dx.doi.org/10.1016/S0140-6736%2812%2960071-3
- NCBI 2017的人类基因组资源。 https://www.ncbi.nlm.nih.gov/projects/genome/guide/human/
- Izetbegovic S.与Rh阴性母亲发生ABO和RhD不相容。 本草社会医学。 2013; 25(4):255-258。 doi:10.5455 / msm.2013.25.255-258。
- 詹姆斯·WH。 关于男性同性恋和恋童癖起因的两个假设。 J.biosoc.Sci,(2006)38,745 – 761,doi:10.1017 / S0021932005027173
- James,WH(1975)现有同胞的性别比和性别组成。 安 哼 基因 38,371 – 378。
- James,WH(1985)性别比例的所谓前兄弟效应。 行为。 脑科学。 8,453。
- James,WH(1996)有证据表明,出生时的哺乳动物性别比部分受孕时父母激素水平的控制。 理论生物学杂志180,271 – 286。
- James,WH(2004)男性同性恋中兄弟出生顺序影响的原因。 生物社会科学杂志36,51 – 59,61 – 62。
- James,WH(2004b)进一步的证据表明,出生时的哺乳动物性别比在受孕时受到父母激素水平的部分控制。 人工复制19,1250 – 1256。
- Jinich,S.,Paul,JP,Stall,R.,Acree,M.,Kegeles,S.,Hoff,C.&Coates,T.(1998)男同性恋和双性恋男性的童年性虐待和HIV冒险行为... 艾滋病与行为2,41-51。
- Johnson,RL&Shrier,DK(1987)在青少年医学诊所中,男性患者的女性曾遭受过性侵害。 上午。 J.精神病学。 144,650-652。
- 堪萨斯州Juntunen,劳拉(Laara),EM和AJ考普拉拉(Kauppila)(1997年)盛大的多重出生率和出生体重。 妇产科90,495-499。
- Kallmann,Franz J.,“男性同性恋遗传方面的比较双胞胎研究”,《神经与精神疾病杂志》 115,第1期。 4(1952):283 – 298
- Kano,T.,Mori,T.,Furudono,M.,Kanda,T.,Maeda,Y.,Tsubokura,S.,Ushiroyama,T.&Ueki,M.(2004)妇女流产和新生儿的性别差异同种免疫反复流产。 生殖生物医学在线9,306-311。
- 肯德勒·KS(Kendler KS)等人,“美国双胞胎和非双胞胎同胞对的国家样本中的性取向”,《美国精神病学杂志》第157号。 11(2000):1843 – 1846,http://dx.doi.org/10.1176/appi.ajp.157.11.1843
- Kishida,M.和Rahman,Q.(2015年)。 异性恋的出生顺序和极端的右撇子行为可以预测男性的性取向和性别不整合。 性行为档案,44,1493-1501。 https://土井。 组织/ 10.1007 / s10508-014-0474-0。
- Kleinplatz&Diamond 2014,APA手册,第1卷,第256-257页
- 柯比(Wolshaw)智商。 脑可塑性和行为。 心理学年度回顾。 卷 49:43-64。 https://doi.org/10.1146/annurev.psych.49.1.43
- Kranz F等人,“性取向调节了面部知觉”,《现代生物学》第16号,没有。 1(2006):63 – 68,http://dx.doi.org/10.1016/j.cub.2005.10.070
- Kristensen,P.和Bjerkedal,T.(2007)。解释出生顺序和智力之间的关系。 科学,316,1717. https://doi.org/10.1126/ science.1141493XNUMX。
- Lalumiere,ML,Harris,GT,Quinsey,VL&Rice,ME(1998)性犯罪和性犯罪者中哥哥的数量。 性虐待:研究与治疗杂志10,5-15。
- LångströmNiklas等人,“对同性性行为的遗传和环境影响:瑞典双胞胎的种群研究”,性行为档案39,第1期。 1(2010):75 – 80,http://dx.doi.org/10.1007/s10508-008- 9386-1。
- Lasco MS等人,“人类前脸连合中缺乏性别或性取向的双态性”,《大脑研究》,936,第1期。 1(2002):95 – 98,http://dx.doi.org/10.1016/S0006-8993(02)02590-8
- Laumann,EO,Gagnon,JH,Michaels,S.&Michael,RT(1993)监测艾滋病和其他罕见人群事件:一种网络方法。 健康与社会行为杂志34,7-22。
- 劳特巴赫,医学博士,拉兹,S。和桑德,CJ(2001)早产儿的新生儿缺氧风险:性别和呼吸窘迫程度对认知恢复的影响。 神经心理学15,411-420。
- Lee,JKP等。 (2002)性犯罪的发展风险因素。 儿童虐待内格。 26,73 – 92。
- Lee,RM&Silver,RM(2000)经常性流产:总结和临床建议。 生殖医学研讨会18,433-440。
- Lenderking,WR,Wold,C.,Mayer,KH,Goldstein,R.,Losina,E.&Seage,GR(1997)同性恋男子的童年性虐待。 患病率和与不安全性行为的关联。 普通内科杂志12,250-253。
- Lenroot RK,Gogtay N,Greenstein DK等。 童年和青春期大脑发育轨迹的性二态性。 神经影像 2007; 36(4):1065-1073。 doi:10.1016 / j.neuroimage.2007.03.053。
- LeVay Simon,“异性恋和同性恋男性下丘脑结构的差异”,《科学》第253号,第1期。 5023(1991):1034 – 1037,http://dx.doi.org/10.1126/science.1887219
- LeVay,S.(2016)。同性恋,直,原因:性取向的科学(2nd编辑。)。 英国牛津:牛津大学出版社。
- Lippa Richard A。,“ 2D:4D手指长度比率是否与性取向有关? 是,对于男人来说是,对于女人来说不是,”人格与社会心理学杂志85,否。 1(2003):179 – 188,http://dx.doi.org/10.1037/0022-3514.85.1.179
- Lombardi,CM和Hurlbert,SH(2009)。 误处方和滥用单尾测试。 南方生态,34,447-468。
- 行为科学博士Lykken,DT,McGue,M.,Tellegen,A。,“双胞胎研究中的招聘偏见:对TwoThird的规则进行了重新考虑”。 基因1987; 17:343
- MacCulloch,SI,Gray,NS,Phillips,HK,Taylor,J.&MacCulloch,MJ(2004)性别违法和攻击性男子的出生顺序。 性行为档案33,467–474。
- Magnus,P.,Berg,K.&Bjerkedel,T.(1985)均等与出生体重的关系:检验致敏性假设。 人类早期发展12,49–54
- Maguire EA,Gadian DG,Johnsrude IS等。 出租车司机海马体中与导航有关的结构变化。 美利坚合众国国家科学院院刊。 2000; 97(8):4398-4403。
- Mainardi M等。 环境,瘦素敏感性和下丘脑可塑性。 神经可塑性。 2013。 第2013卷(2013),商品ID 438072,8页http://dx.doi.org/10.1155/2013/438072
- Manikkam,M.,Crespi,EJ,Doop,DD,Herkimer,C.,Lee,JS,Yu,S.,Brown,MB,Foster,DL&Padmanabhan,V.(2004)胎儿编程:产前睾丸激素过多会导致胎儿的胎儿发育迟缓和产后追赶生长。 内分泌学145-790。
- 曼宁JT。 (2001)数字比率:指向生育,行为和健康的指标。 罗格斯大学出版社,伦敦。
- Mantilla K.生物学,我的屁股。 离我们远去:5年2004月XNUMX日出版的女性新闻杂志。
- Martin,RM,Smith,GD,Mangtani,P.,Frankel,S.和Gunnell,D.(2002)母乳喂养与生长之间的关联:Boyd – Orr队列研究。 儿童疾病档案-胎儿和新生儿版87,F193–201。
- Mayer Lawrence S.和McHugh Paul R.,《性与性别:生物学,心理学和社会科学的发现》,《新亚特兰蒂斯》,第50号,第2016秋季,第1页。 116。 http://www.thenewatlantis.com/sexualityandgender
- Mbugua K.性取向和脑结构:对近期研究的评论。 最新科学卷 84,否 2(25 2003 173),第pp。 178-6(24108095页)。 https://www.jstor.org/stable/XNUMX
- McConaghy,N.,Hadzi-Pavlovic,D.,Stevens,C.,Manicavasagar,V.,Buhrich,N.&Vollmer-Conner,U.(2006)男女的异性出生顺序和异性/同性恋感的比率... 同性恋杂志51,161-174。
- McFadden Dennis和Shubel Erin,“男性和女性的手指和脚趾的相对长度”,激素和行为42,第1期。 4(2002):492 – 500,http://dx.doi.org/10.1006/hbeh.2002.1833
- Milinski,M.(2006)。 主要组织相容性复杂,性别选择和伴侣选择。 37,159 – 186生态学和系统学年度回顾。
- Mitter C,Jakab A,Brugger PC等。 用组织学结构张量分析验证胎儿胎合和内囊纤维的宫内术。 神经解剖学前沿。 2015; 9:164。 doi:10.3389 / fnana.2015.00164。
- Morikawa,M.,Yamada,H.,Kato,EH,Shimada,S.,Yamada,T.&Minakami,H.(2004)在反复流产的女性中,正常染色体核型的流产中胚胎丢失的模式最为明显。 人类繁殖19,2644-2647。
- 穆克吉,悉达多。 基因:亲密的历史。 西蒙和舒斯特(纽约),2016。
- Mustanski BS,Dupree MG,Nievergelt CM,Bocklandt S,Schork NJ,Hamer DH。 对男性性取向进行全基因组扫描。 嗡嗡声 2005 3月; 116(4):272-8。 Epub 2005 1月12。
- 纽约本地人7-10-1995,同性恋基因研究并未受到严格审查,芝加哥论坛报的约翰·克鲁德森(John Crewdson)发现了NCI研究人员可能存在的科学不端行为。
- NewsBeat(2015)无可辩驳的科学证明Michelle Obama的确是个男人。 24.11.2015年XNUMX月XNUMX日。 newsbeat.co.ke/gossip/irrefutable-scientific-proof-michelle-obama-indeed-a-man/
- 新闻周刊:2月24,1992 p.49
- NIAAA(2012)酗酒家族史。 美国国家酒精滥用和酒精中毒研究所。 https://pubs.niaaa.nih.gov/publications/familyhistory/famhist.htm
- Nimmons D.性与大脑。 发现。 01.03.1994。 discovermagazine.com/1994/mar/sexandthebrain346
- Ngun TC,Guo W,Ghahramani NM,Purkayastha K,Conn D,Sanchez FJ,Bocklandt S,Zhang M,Ramirez CM,Pellegrini M,Vilain E.使用表观遗传标记的新型性取向预测模型。 摘要:使用表观遗传标记的新型性取向预测模型。 在美国人类遗传学会2015年会上发表。 马里兰州巴尔的摩
- 诺基亚MS等。 只要有氧运动并且持续运动,体育锻炼就会增加雄性大鼠的成年海马神经发生。 J生理学。 2016 4月1; 594(7):1855-73。 doi:10.1113 / JP271552。 Epub 2016 2月24。
- Norton R.同性恋是遗传的吗? 纽约书评,(1995,七月)。 www.pbs.org/wgbh/pages/frontline/shows/assault/genetics/nyreview.html
- Nunez,JL和McCarthy,MM(2003)在早产儿婴儿脑损伤模型中的性别差异和荷尔蒙作用。 纽约科学院院刊1008,281-284。
- Paglia C.鞋面与流浪汉:新杂文。 复古书籍,1994年,第71-72页。
- 帕什利·路易斯(Parshley Lois)。 基因可以杀死你吗? 大众科学。 28.04.2016。 https://www.popsci.com/can-your-genes-make-you-kill
- Paul,JP等。 (2001)将儿童的性虐待理解为与男性发生性关系的男性承担性风险的预测因素:城市男性健康研究。 儿童虐待内格。 25,557 – 584。
- Paulhus,DL(2008).Birthorder.InM.Haith(Ed。),婴儿和幼儿发展百科全书(第1卷,第204 – 211页)。 加利福尼亚州圣地亚哥:AcademicPress。 https://doi.org/10.13140/2.1.3578.3687。
- Paus T.在青春期映射大脑成熟和认知发展。 认知科学的趋势。 2005; 9(2):60-68。 https://doi.org/10.1016/j.tics.2004.12.008
- Pierik,FH,Burdorf,A.,Deddens,JA,Juttmann,RE,和Weber,RFA(2004)。 隐睾症和尿道下裂的母亲和父亲风险因素:新生儿男孩的病例对照研究。 《环境与健康透视》,112,1570-1576
- Poasa,KH,Blanchard,R.,&Zucker,KJ(2004)。 来自波利尼西亚的变性男性的出生顺序:萨摩亚fa'-afafine的定量研究。 《性与婚姻疗法杂志》,30,13-23。 doi:10.1080 / 00926230490247110。
- Pulst SM ..遗传连锁分析。 大神经元。 1999; 56(6):667 – 672。 doi:10.1001 / archneur.56.6.667
- Pumberger,W.,Pomberger,G.&Geissler,W.(2001)母乳喂养婴儿的结肠炎:对幼儿早期血友病的鉴别诊断。 研究生医学杂志77,252-254。
- Purcell,DW,Blanchard,R。和Zucker,KJ(2000)。 当代男同性恋者的出生顺序。 性行为档案,29,349–356。
- 通过选择来奇怪。 盖尔·麦德温(Gayle Madwin)http://www.queerbychoice.com/
- Rahman Qazi和Wilson Glenn D.,“性取向和2nd与4th手指的长度比:性激素或发育不稳定性的组织效应的证据?”,神经内分泌学28,否。 3(2003):288 – 303,http://dx.doi.org/10.1016/S0306-4530(02)00022-7
- Rainer,JD,Mesnikoff,A.,Kolb,LC,Carr,A.,“同卵双胞胎中的同性恋和异性恋”(包括FJ Kallmann的讨论)。 1960; 22:251
- Ramagopalan SV,Dyment DA,Handunnetthi L,Rice GP,Ebers GC。 对男性性取向进行全基因组扫描。 J Hum Genet。 2010 2月; 55(2):131-2。 http://dx.doi.org/10.1038/jhg.2009.135
- Remafedi G等。 (1992)青少年中的性吸引力人口统计。 儿科89,714 – 721。
- Rice G等人,“男性同性恋:在Xq28上没有与微卫星标记的联系”,科学284,第1期。 5414(1999):665 – 667,http://dx.doi.org/10.1126/science.284.5414.665
- Richiardi,L.,Akre,O.,Lambe,M.,Granath,F.,Montgomery,SM&Ekbom,A.(2004)出生顺序,同胞大小和生殖细胞睾丸癌的风险。 流行病学15,323-329。
- Rind,B.(2001)男同性恋和双性恋青年男孩与男人的性经历:在非临床样本中对心理相关性的实证检验。 性行为档案30,345 – 368。
- Risch N,Squires-Wheeler E,济慈BJ。 男性性取向和遗传证据。 科学。 1993 12月24; 262(5142):2063-5。 DOI:10.1126 /科学8266107
- Robinson SJ和Manning John T。,“ 2nd与4th位数长度和男性同性恋的比例”,《进化与人类行为》,21,No。 5(2000):333 – 345,http://dx.doi.org/10.1016/S1090-5138(00)00052-0
- Rohrer,JM,Egloff,B.,&Schmukle,SC(2015)研究出生顺序对人格的影响。 美国国家科学院院刊,112,14224-14229。Https://doi.org/10.1073/pnas.1506451112。
- 《罗萨里奥与斯克林肖》 2014年,APA手册,第1卷,第579页
- Rosenthal,D.,“遗传理论与异常行为”,1970年,纽约:McGrawHil
- Sale A等。 环境和大脑可塑性:走向内源性药物治疗。 心理评论2014; 卷 94,否 1。 https://doi.org/10.1152/physrev.00036.2012
- Salmon,C.(2012)。 出生顺序,对人格和行为的影响。 在V. Ramachandran(Ed。)中,《人类行为百科全书》(第1卷,第353 – 359页)。 伦敦:爱思唯尔。 https://doi.org/10.1016/B978-0-12-3750 00-6.00064-1。
- 桑德伯格(Sandberg),迈耶-巴尔伯格(Meyer-Bahlburg),HFL,雅格,TJ,汉斯勒,TW,莱维特,SB,科根,SJ和雷达(EF)(1995)。 心理神经内分泌学20,693–709
- Sanders AR等人,“全基因组扫描显示与男性性取向存在显着联系,”心理医学45,第1期。 07(2015):1379 – 1388,http://dx.doi.org/10.1017/S0033291714002451
- Sanders AR等人。 男性性取向的全基因组关联研究。 科学代表 2017; 7:16950。 http://dx.doi.org/10.1038/s41598-017-15736-4
- Satinover J.同性恋与真理政治。 Raker图书1996。
- Savic I等人,“对同性恋男性对假定的信息素的脑反应”,美国国家科学院学报102,No。 20(2005):7356 – 7361,http://dx.doi.org/10.1073/pnas.0407998102
- Savin-Williams,R. C&Ream,GL(2006)青少年国家概率样本中的青春期发病和性取向。 性行为档案35,279-286。
- 科学媒体中心(2015)。 关于表观遗传学和男性性取向的会议演讲(未发表的工作)的专家反应。 十月8,2015。 http://www.sciencemediacentre.org/expert-reaction-to-conference-presentation-unpublished-work-on-epigenetics-and-male-sexual-orientation/
- Semenyna,SW,Petterson,LJ,VanderLaan,DP和&Vasey,PL(2017)。 萨摩亚男性亲亲法阿法芬和妇人亲属生殖产量的比较。 性行为档案,46,87–93。
- Serano,JM(2010)。 “反对妇科病案”。 国际变性论杂志。 12(3):176-187。 doi:10.1080 / 15532739.2010.514223
- Smith,MJ,Creary,MR,Clarke,A.&Upadhyaya,M.(1998)具有正常核型的自然流产中的性别比和单亲二倍体缺失。 临床遗传学53,258-261。
- Sorensen,HT,Olsen,ML,Mellemkjaer,L.,Lagiou,P.,Olsen,JH&Olsen,J.(2005)男性乳腺癌的子宫内起源; 丹麦的出生顺序研究。 欧洲癌症预防杂志14,185-186。
- Speiser PW等人,“由于类固醇21-羟化酶缺乏症导致的先天性肾上腺皮质增生:内分泌学会临床实践指南”,《临床内分泌与代谢杂志》 95,无。 9(2009):4133 – 4160,http://dx.doi.org/10.1210/jc.2009-2631
- Speiser PW,White PC,“先天性肾上腺皮质增生”,《新英格兰医学杂志》 349,no。 8(2003):776 – 788,http://dx.doi.org/10.1056/NEJMra021561
- 斯坦因·爱德华(Stein,Edward),《欲望的错位:性取向的科学,理论和伦理》(纽约:牛津大学出版社,1999),145
- 萨洛威(FNUM)(1996)。 生于叛逆者:出生次序,家庭动态和创造生活。 纽约:万神殿书。
- Swaab DF,“性取向及其在大脑结构和功能中的基础”,《美国国家科学院学报》 105,No。 30(2008):10273 – 10274,http://dx.doi.org/10.1073/pnas.0805542105
- Tannehill B. New Yorker可耻地引用了反LGBT“研究者”。 Bilerico项目。 29年2014月2014日。bilerico.lgbtqnation.com/07/XNUMX/new_yorker_shamefully_cites_anti-lgbt_researcher.php
- 泰勒·蒂姆·泰勒(Taylor,Tim),“同性恋双胞胎研究”,大学学位论文,剑桥大学实验心理学系,1992年。
- 纽约时报(2004)。 婚礼/庆典; 迪恩·哈默(Dean Hamer),约瑟夫·威尔逊(Joseph Wilson)。 4月11,2004。 www.nytimes.com/2004/04/11/style/weddings-celebrations-dean-hamer-joseph-wilson.html(已通过01.12.2017验证)
- 恢复村(2017)。 为什么酒精中毒不是遗传性的。 恢复村。 https://www.therecoveryvillage.com/alcohol-abuse/faq/alcoholism-not-hereditary/#gref
- Theodosis DT等。 在成年哺乳动物下丘脑中依赖于活动的神经胶质和突触可塑性。 Neuroscience卷57,第3期,12月1993,第501-535页。 https://doi.org/10.1016/0306-4522(93)90002-W
- Tomeo, M.E., Templer, D.I., Anderson, S. & Kotler, D. (2001) 异性恋与同性恋者童年及青少年期性骚扰的比较数据。《性行为档案》第30卷,535–541页。(数据来自本文)
- Tsroadsmap。 绝对错误? Bailey-Blanchard-Lawrence交换所http:// //www.tsroadmap.com/info/bailey-blanchard-lawrence.html
- Turner,MC,Bessos,H.,Fagge,T.,Harkness,M.,Rentoul,R.,Seymour,J。等。 (2005)前瞻性流行病学研究,分析了由ani-HPA-1a引起的新生儿同种免疫性血小板减少症的产前筛查结果和成本效益。 输血45,1945 – 1956。
- 拉曼(Rahman Q.)http://dx.doi.org/10.1037/0735-7044.117.5.1096
- Van Ombergen,A.,Jillings,S.,Jeurissen,B.,Tomilovskaya,E.,Rühl,RM,Rumshiskaya,A.,... Wuyts,FL(2018)。 脑组织–宇航员的体积变化。 新英格兰医学杂志,379(17),1678 – 1680。 doi:10.1056 / nejmc1809011
- VanderLaan,DP,Blanchard,R.,Wood,H.,LC,Garzon,&Zucker,KJ(2015)。 出生体重和两种可能的产妇对男性性取向的影响:一项针对儿童和青少年的临床研究被称为性别认同服务。 发育心理生物学,57,25-34。 https://doi.org/10.1002/dev.21254。
- Voracek Martin,Manning John T.和Ponocny Ivo,“来自奥地利的同性恋者中的数字比率(2D:4D)”,《性行为档案》,34。 3(2005):335 – 340,http://dx.doi.org/10.1007/s10508-005-3122-x
- Wedekind,C.,Seebeck,T.,Bettens,F。,&Paepke,AJ(1995)。 人类中依赖MHC的伴侣的喜好。 生物科学进展,22,245-249。
- Wellings,K。等。 (1994)英国的性行为:全国性态度和生活方式调查。 伦敦企鹅出版社
- 怀特海NE。 抗男孩抗体? 重新检查产妇的免疫假说。 J.biosoc.Sci。 2007。 doi:10.1017 / S0021932007001903
- Williams TJ等人,“手指长宽比和性取向”,《自然》第404号,没有。 6777(2000):455 – 456,http://dx.doi.org/10.1038/35006555
- Zev威廉姆斯(20年2012月367日)。 诱导对怀孕的耐受性。 新英格兰医学杂志。 1159:1161-10.1056。 doi:1207279 / NEJMcibr3644969。 PMC XNUMX
- 威尔逊JD等。 性发育的激素控制。 科学211(1981):1278 – 1284,http://dx.doi.org/10.1126/science.7010602
- 巫婆亚历克斯。 辛西娅·尼克松的采访。 纽约时报杂志。 “性”之后的生活。 一月2012。 http://www.nytimes.com/2012/01/22/magazine/cynthia-nixon-wit.html
- 温德森(M.H.)(2003)。 妇产科和雷·布兰查德(Ray Blanchard)误导了变性欲的性欲模型。 混血儿:一位跨性别心理学教授对生活,性别心理学和性别认同障碍的看法。 可用:http://www.GenderPsychology.org/autogynpehilia/ray_blanchard/
- Wyre,R.(1990)为什么男人会对孩子进行性虐待? 在Tate,T。(主编)《儿童色情》中。 伦敦Methuen,pp。 281 – 288。
- Xanthakos,SA,Schwimmer,JB,Aldana,HM,Rothenberg,ME,Witte,DP&Cohen,MB(2005)患有直肠出血的健康婴儿的过敏性结肠炎的患病率和结局:一项前瞻性队列研究。 小儿胃肠病学杂志41,16-22。
- Yong E.不,科学家尚未找到“同性恋基因”。 媒体大肆宣传一项研究没有做到它所说的。 科学。 十月10,2015。 https://www.theatlantic.com/science/archive/2015/10/no-scientists-have-not-found-the-gay-gene/410059/
- Zanin E,Ranjeva JP,Confort-Gouny S等。 正常人胎脑的白质成熟。 体内扩散张量管束成像研究。 大脑和行为。 2011; 1(2):95-108。 doi:10.1002 / brb3.17。
- Zietsch BP。 关于异胞兄弟出生顺序效应的谨慎原因。 拱门性行为。 2018。 DOI 10.1007 / s10508-017-1086-2
- Zietsch,BP,Verweij,KJH,Heath,AC,Madden,PAF,Martin,NG,Nelson,EC,... Lynskey,MT(2012)。 共有的病因会导致性取向和抑郁之间的关系吗?心理医学,42,521 – 532。 doi:10.1017 / s0033291711001577
- Zusman,I.,Gurevich,P.和Ben-Hur,H.(2005)人类子宫内发育的两种分泌免疫系统(粘膜和屏障),正常和病理性(综述)。 国际分子医学杂志16,127-133。
即使有同卵双胞胎,同性恋也被调整为1:1。 然后,有必要为父母提供发病率,经济问题,以保持健康质量并确保与孩子的接触,家庭问题,犯罪风险等,让他们的孩子承受这些痛苦,每个人都非常关心他们的幸福,邀请他独立(?)选择这样的生活方式... 我正在尝试这样做,但是他们开始阻止。
一个理性的人,我认为他理解这是公司利益。 轻描淡写。 作为联邦政府为人类福祉服务的专家,我真诚地不建议这种幸福,在这种幸福中,不仅幸福,而且吸引人的幸福规范也不会“闻”。 我无法想象有人会对这种性行为的安全性提出任何卫生建议(开玩笑的含泪...)。 顺便说一句,我会尝试搜索。